Section outline
-
مقدمه
سلولهای بنیادی جمعیتهایی از سلولها هستند که نقش مهمی در تکوین موجود زنده، حفظ هموستاز بافتی، جایگزینی سلولهای از دسترفته و بازسازی برخی بافتها پس از آسیب ایفا میکنند. ویژگی متمایزکننده این سلولها صرفاً توانایی تقسیم و تکثیر نیست، بلکه ترکیبی از خودنوزایی و ظرفیت ایجاد سلولهای تمایزیافته است. این دو ویژگی تحت کنترل شبکهای پویا از عوامل رونویسی، تنظیمات اپیژنتیکی، مسیرهای پیامرسانی داخلسلولی، وضعیت متابولیک و سیگنالهای حاصل از ریزمحیط اطراف سلول قرار دارند.
در نگاه کلاسیک، سلول بنیادی اغلب بهصورت یک نوع سلولی با مجموعهای ثابت از خصوصیات تعریف میشد. با این حال، مطالعات جدید نشان دادهاند که بنیادینگی بیش از آنکه یک فنوتیپ ثابت باشد، یک وضعیت عملکردی و تکوینی پویا است که تحت تأثیر هویت سلولی، مرحله تکوینی، وضعیت فیزیولوژیک و ریزمحیط بافت قرار میگیرد. در بافتهای بالغ نیز ویژگیهایی مانند طول عمر و خودنوزایی، ظرفیت تمایز، پلاستیسیته، وابستگی به ریزمحیط و حفظ تمامیت ژنومی از مؤلفههای مهم عملکرد سلولهای بنیادی محسوب میشوند.
این دیدگاه برای درک مفاهیمی مانند بنیادینگی، خودنوزایی، توان تمایزی، پلاستیسیته سلولی، بازبرنامهریزی، ریزمحیط سلول بنیادی و پزشکی بازساختی اهمیت اساسی دارد. در این درس، اصول اولیه این مفاهیم بررسی میشوند و انواع مختلف سلولهای بنیادی در درسهای مستقل بهطور تخصصی مورد بحث قرار خواهند گرفت.
۱. مفهوم بنیادینگی
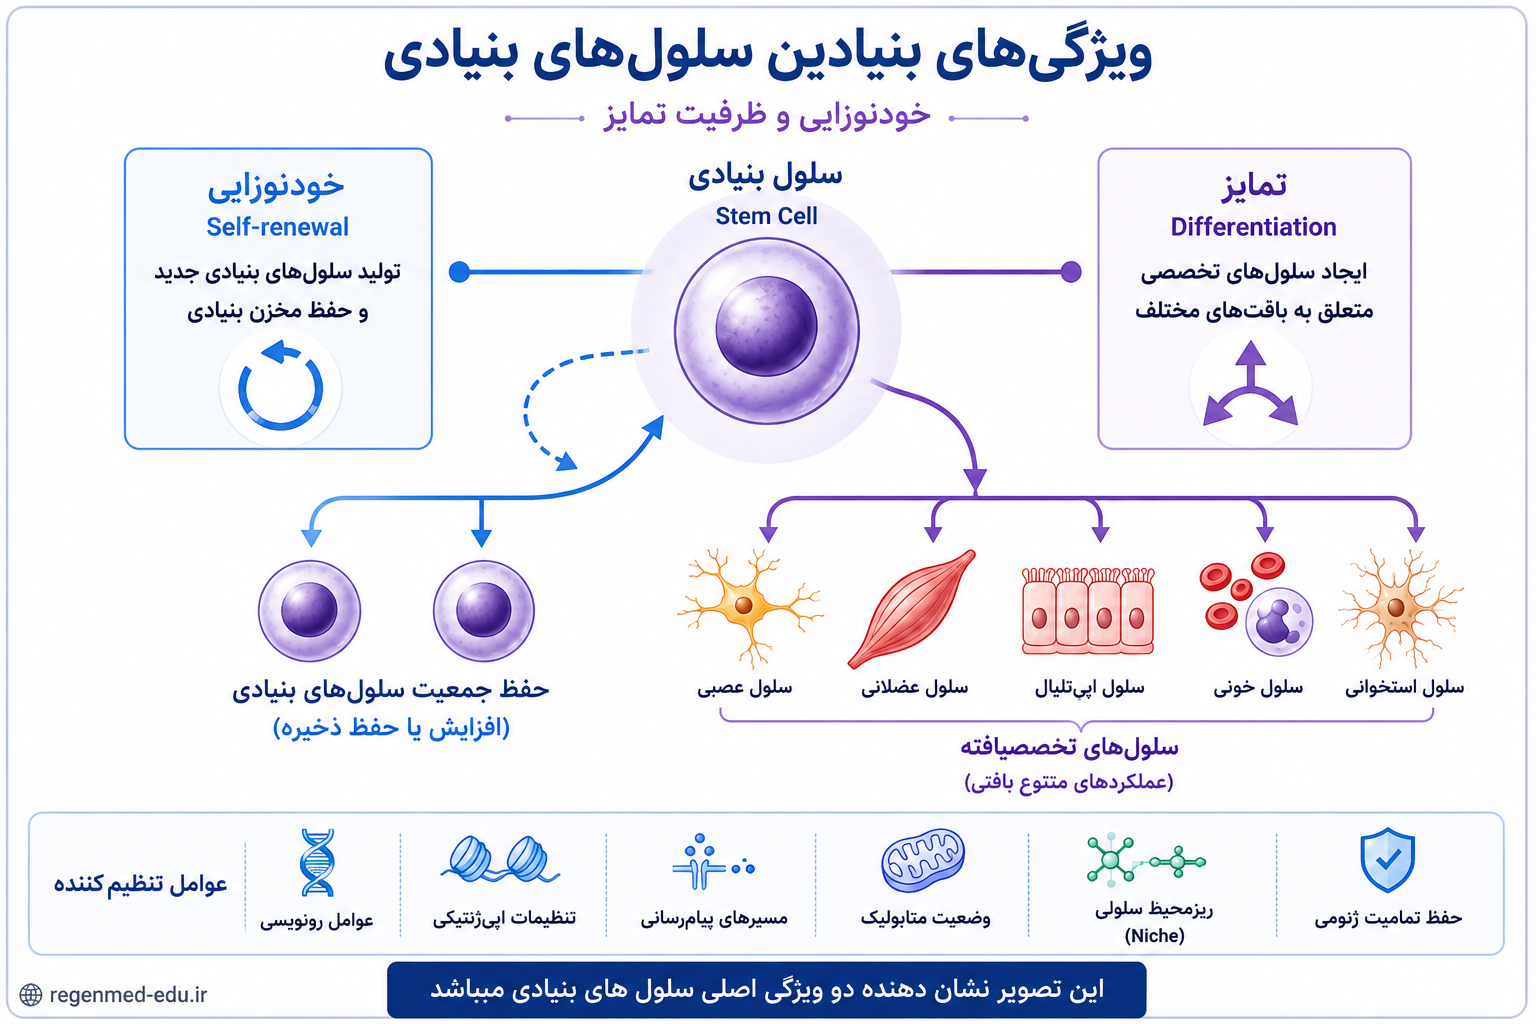
اصطلاح Stemness یا بنیادینگی به مجموعهای از ویژگیهای عملکردی و مولکولی اشاره دارد که به یک سلول اجازه میدهد هویت بنیادی خود را حفظ کند و در عین حال، در پاسخ به سیگنالهای مناسب، سلولهای متعهد یا تمایزیافته ایجاد نماید. در تعریف کلاسیک، دو مؤلفه اساسی بنیادینگی شامل خودنوزایی و توان تمایزی هستند.
خودنوزایی به توانایی سلول بنیادی برای تقسیم در شرایطی گفته میشود که حداقل بخشی از سلولهای حاصل، ویژگیهای بنیادی جمعیت اولیه را حفظ کنند. این مفهوم با تکثیر ساده متفاوت است. بسیاری از سلولهای بدن میتوانند در شرایط مشخص وارد چرخه سلولی شده و تکثیر شوند، اما تکثیر بهتنهایی نشاندهنده بنیادینگی نیست. برای مثال، یک سلول پیشساز ممکن است در مدت کوتاهی تعداد زیادی تقسیم انجام دهد، اما اگر توانایی حفظ طولانیمدت جمعیت اولیه خود را نداشته باشد، نمیتوان صرفاً به دلیل تکثیر بالا آن را یک سلول بنیادی واقعی در نظر گرفت.
توان تمایزی نیز به ظرفیت یک سلول برای ایجاد یک یا چند نوع سلول تخصصیافته اشاره دارد. گستره این توان در انواع مختلف سلول بنیادی متفاوت است؛ بهطوری که برخی سلولها قادر به ایجاد تقریباً تمام سلولهای سوماتیک بدن هستند، در حالی که برخی دیگر تنها میتوانند سلولهای متعلق به یک بافت یا حتی یک دودمان مشخص را ایجاد کنند.
بنابراین، بنیادینگی یک ویژگی تکبعدی نیست. رفتار یک سلول بنیادی حاصل تعامل بین برنامههای ژنتیکی و اپیژنتیکی درون سلول و سیگنالهایی است که از محیط اطراف دریافت میکند. علاوه بر این، متابولیسم، وضعیت اکسیداتیو، پاسخ به آسیب DNA، سازمان کروماتین و تعاملات سلول با ماتریکس خارج سلولی نیز میتوانند بر حفظ یا تغییر وضعیت بنیادی اثر بگذارند. مطالعات جدید بهویژه بر نقش متابولیسم در کنترل تکثیر، سکون، پاسخ به استرس و هویت سلول بنیادی تأکید دارند.
۲. تقسیم متقارن و نامتقارن سلولهای بنیادی
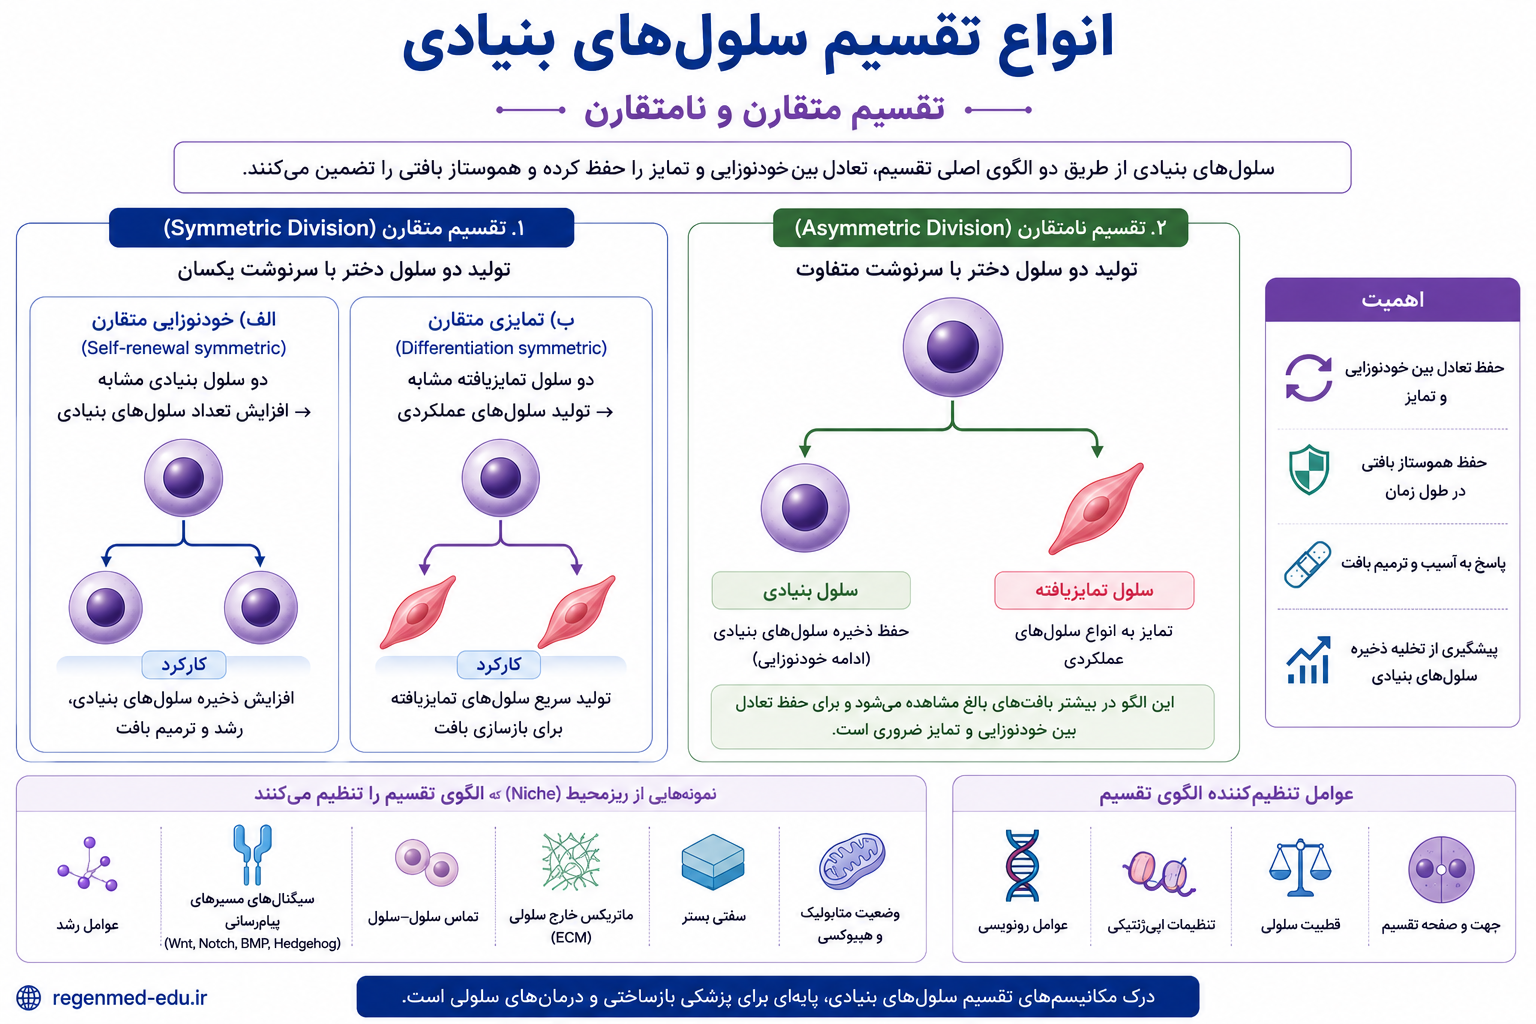
یکی از مکانیسمهای مهم تنظیم جمعیت سلولهای بنیادی، تعیین سرنوشت سلولهای دختر پس از تقسیم است. از این نظر، تقسیم سلول بنیادی میتواند پیامد متقارن یا نامتقارن داشته باشد. این تقسیمبندی به سرنوشت سلولهای حاصل اشاره دارد و نباید آن را دو نوع متفاوت از فرایند میتوز تلقی کرد.
در تقسیم متقارن با هدف خودنوزایی، هر دو سلول دختر خصوصیات بنیادی را حفظ میکنند و در نتیجه مخزن سلولهای بنیادی افزایش مییابد. چنین الگویی در دوره رشد، هنگام گسترش یک بافت یا در برخی پاسخهای بازسازیکننده میتواند اهمیت داشته باشد. در مقابل، در یک تقسیم متقارن تمایزی، هر دو سلول دختر از وضعیت بنیادی خارج شده و به سمت تعهد دودمانی حرکت میکنند که در صورت تداوم میتواند باعث کاهش مخزن سلولهای بنیادی شود.
در تقسیم نامتقارن، دو سلول دختر سرنوشت متفاوتی پیدا میکنند؛ بهطوری که یکی از آنها خصوصیات بنیادی را حفظ میکند، در حالی که دیگری وارد مسیر تعهد و تمایز میشود. این سازوکار امکان حفظ نسبتاً پایدار مخزن سلولهای بنیادی در کنار تولید مستمر سلولهای مورد نیاز بافت را فراهم میکند.
با این حال، باید توجه داشت که عدم تقارن سرنوشت الزاماً از همان لحظه تقسیم میتوز ایجاد نمیشود. در برخی بافتها دو سلول دختر در ابتدا مشابه هستند، اما قرار گرفتن آنها در موقعیتهای متفاوت نسبت به ریزمحیط یا دریافت سیگنالهای متفاوت پس از تقسیم موجب ایجاد سرنوشتهای مختلف میشود. بنابراین، تعادل بین خودنوزایی و تمایز نتیجه تعامل مکانیسمهای درونسلولی و عوامل ریزمحیطی است.
اختلال در این تعادل میتواند پیامدهای مهمی داشته باشد. افزایش بیش از حد خودنوزایی ممکن است به گسترش غیرطبیعی جمعیتهای سلولی کمک کند، در حالی که افزایش بیش از حد تمایز یا کاهش توان خودنوزایی میتواند موجب تخلیه مخزن سلولهای بنیادی و کاهش ظرفیت بازسازی بافت شود.
۳. ریزمحیط سلول بنیادی
سلول بنیادی در بدن بهصورت منفرد و مستقل عمل نمیکند، بلکه در یک محیط تخصصیافته به نام Stem Cell Niche یا ریزمحیط سلول بنیادی قرار دارد. این ریزمحیط مجموعهای از سلولهای مجاور، ماتریکس خارج سلولی، عروق، فاکتورهای محلول، مولکولهای چسبندگی، سیگنالهای عصبی و ایمنی و ویژگیهای فیزیکی محیط است که رفتار سلول بنیادی را تنظیم میکنند.
این ریز محیط میتواند تعیین کند که یک سلول بنیادی در حالت سکون باقی بماند، وارد چرخه سلولی شود، خودنوزایی کند، تمایز یابد یا در پاسخ به آسیب فعال شود. حتی عواملی مانند میزان اکسیژن، سختی ماتریکس، نیروهای مکانیکی، وضعیت التهابی و ترکیب متابولیک محیط میتوانند بر رفتار سلول بنیادی اثر بگذارند.
در نتیجه، هویت یک سلول بنیادی صرفاً توسط ژنهای درون آن تعیین نمیشود، بلکه بخشی از عملکرد آن وابسته به محیطی است که سلول در آن قرار گرفته است. وابستگی به نیچ امروزه یکی از ویژگیهای مهم سلولهای بنیادی بافتی محسوب میشود.
ریزمحیط سلول بنیادی نیز یک ساختار ثابت نیست. افزایش سن، التهاب، آسیب بافتی، بیماریهای متابولیک و تغییرات ماتریکس خارج سلولی میتوانند ویژگیهای نیچ را تغییر دهند و در نتیجه بر عملکرد سلولهای بنیادی اثر بگذارند. این موضوع یکی از دلایلی است که توان بازسازی یک بافت ممکن است با افزایش سن یا در بیماریهای مزمن کاهش یابد.
۴. سکون و فعالشدن سلولهای بنیادی
همه سلولهای بنیادی دائماً در حال تقسیم نیستند. بسیاری از سلولهای بنیادی بافتی میتوانند برای دورههای طولانی در وضعیتی موسوم به Quiescence یا سکون باقی بمانند. سکون معمولاً یک وضعیت برگشتپذیر و فعالانه تنظیمشده است و نباید با پیری سلولی، توقف غیرقابل برگشت چرخه سلولی یا غیرفعال بودن کامل سلول اشتباه گرفته شود.
قرار گرفتن در وضعیت سکون میتواند به حفظ طولانیمدت مخزن سلولهای بنیادی کمک کند، زیرا تعداد تقسیمات سلولی را کاهش داده و از تجمع برخی آسیبهای مرتبط با همانندسازی جلوگیری میکند. در شرایط مناسب، مانند آسیب بافتی یا افزایش نیاز به جایگزینی سلولها، سلول بنیادی میتواند از حالت سکون خارج شود، وارد چرخه سلولی شده و تکثیر و تمایز را آغاز کند.
تعادل میان Quiescence و Activation برای حفظ عملکرد طولانیمدت بسیاری از بافتها اهمیت دارد. برای نمونه، سلولهای بنیادی خونساز، عضلانی و برخی سلولهای بنیادی عصبی دارای جمعیتهایی هستند که میتوانند بین حالتهای خاموش و فعال جابهجا شوند. تنظیم این فرایند حاصل تعامل عوامل درونسلولی و سیگنالهای نیچ است.
۵. پلاستیسیته سلولی
Cellular Plasticity یا پلاستیسیته سلولی به توانایی یک سلول برای تغییر وضعیت فنوتیپی، عملکردی یا سرنوشت دودمانی خود در پاسخ به تغییرات محیطی، آسیب بافتی یا سیگنالهای مولکولی گفته میشود. در زیستشناسی سلولهای بنیادی، این مفهوم نهتنها به سلولهای بنیادی بلکه به سلولهای پیشساز و در برخی شرایط حتی به سلولهای تمایزیافته مربوط میشود.
در دیدگاه کلاسیک، تمایز سلولی عمدتاً بهصورت یک مسیر یکطرفه در نظر گرفته میشد که در آن سلول بنیادی به سلول پیشساز و سپس به سلول بالغ تبدیل میشود. مطالعات جدیدتر، بهویژه مطالعات Lineage Tracing و روشهای تکسلولی، نشان دادهاند که این سلسلهمراتب در بسیاری از بافتها انعطافپذیرتر از تصور گذشته است. هنگام آسیب، التهاب یا بازسازی، برخی سلولها میتوانند وارد حالتهایی شوند که در شرایط هموستاتیک معمول مشاهده نمیشوند.
یکی از اشکال پلاستیسیته، Dedifferentiation یا تمایززدایی است. در این فرایند، یک سلول متعهد یا تمایزیافته بخشی از خصوصیات تخصصی خود را از دست میدهد و به وضعیت کمتر تمایزیافته بازمیگردد. چنین سلولی ممکن است دوباره ظرفیت تکثیر یا برخی ویژگیهای پیشسازمانند را به دست آورد. تمایززدایی در بازسازی برخی بافتها پس از آسیب مشاهده شده است، اما میزان و اهمیت آن به نوع بافت و شرایط زیستی بستگی دارد.
شکل دیگری از پلاستیسیته، Transdifferentiation یا تغییر مستقیم دودمان است. در این حالت یک سلول دارای هویت مشخص به نوع سلولی دیگری تبدیل میشود، بدون آنکه الزاماً ابتدا وارد یک وضعیت پرتوان کامل شود. این تغییر میتواند از طریق حالتهای میانی صورت گیرد و در برخی سیستمهای زیستی بهطور طبیعی یا در اثر مداخلات آزمایشگاهی رخ دهد.
نوع دیگری از انعطافپذیری را میتوان تغییر تعهد دودمانی در نظر گرفت. در این وضعیت یک سلول بنیادی یا پیشساز که به سمت یک مسیر تمایزی خاص حرکت کرده است، در پاسخ به تغییر شرایط، مسیر متفاوتی را انتخاب میکند. این پدیده عمدتاً در سلولهایی رخ میدهد که هنوز به مرحله تمایز نهایی نرسیدهاند و با مفهوم تبدیل مستقیم دو سلول کاملاً بالغ به یکدیگر تفاوت دارد.
پلاستیسیته برای بازسازی بافت مفید است، اما همیشه پدیدهای سودمند نیست. فعالشدن طولانیمدت برنامههای تکوینی و پلاستیسیته بیش از حد میتواند در برخی شرایط با فیبروز، تغییرات پیشسرطانی یا پیشرفت سرطان همراه باشد. بنابراین پلاستیسیته باید یک ویژگی وابسته به شرایط و قابل تنظیم در نظر گرفته شود.
۶. بازبرنامهریزی سلولی
Cellular Reprogramming یا بازبرنامهریزی سلولی به تغییر برنامه مولکولی و اپیژنتیکی سلول بهگونهای گفته میشود که هویت یا وضعیت تکوینی آن تغییر کند. بازبرنامهریزی نشان داد که حتی هویت یک سلول کاملاً تمایزیافته نیز در شرایط مناسب الزاماً غیرقابل برگشت نیست.
یکی از شناختهشدهترین اشکال این فرایند، بازگرداندن یک سلول سوماتیک تمایزیافته به وضعیت پرتوان و تولید سلول بنیادی پرتوان القاشده یا iPSC است. در مقابل، در Direct Reprogramming میتوان یک نوع سلول را با دستکاری شبکههای تنظیمی مناسب به سمت نوع سلولی دیگری هدایت کرد، بدون آنکه الزاماً یک مرحله پرتوان پایدار ایجاد شود.
پلاستیسیته و بازبرنامهریزی مفاهیم مرتبط اما کاملاً یکسانی نیستند. پلاستیسیته میتواند بخشی از رفتار طبیعی سلول در بافت و در پاسخ به آسیب باشد، در حالی که Reprogramming اغلب به تغییر عمیقتر برنامه هویتی سلول، بهویژه در شرایط آزمایشگاهی، اشاره دارد. جزئیات مکانیسم بازبرنامهریزی در درس مربوط به سلولهای بنیادی پرتوان القاشده بررسی خواهد شد.
۷. پتانسیل تمایز
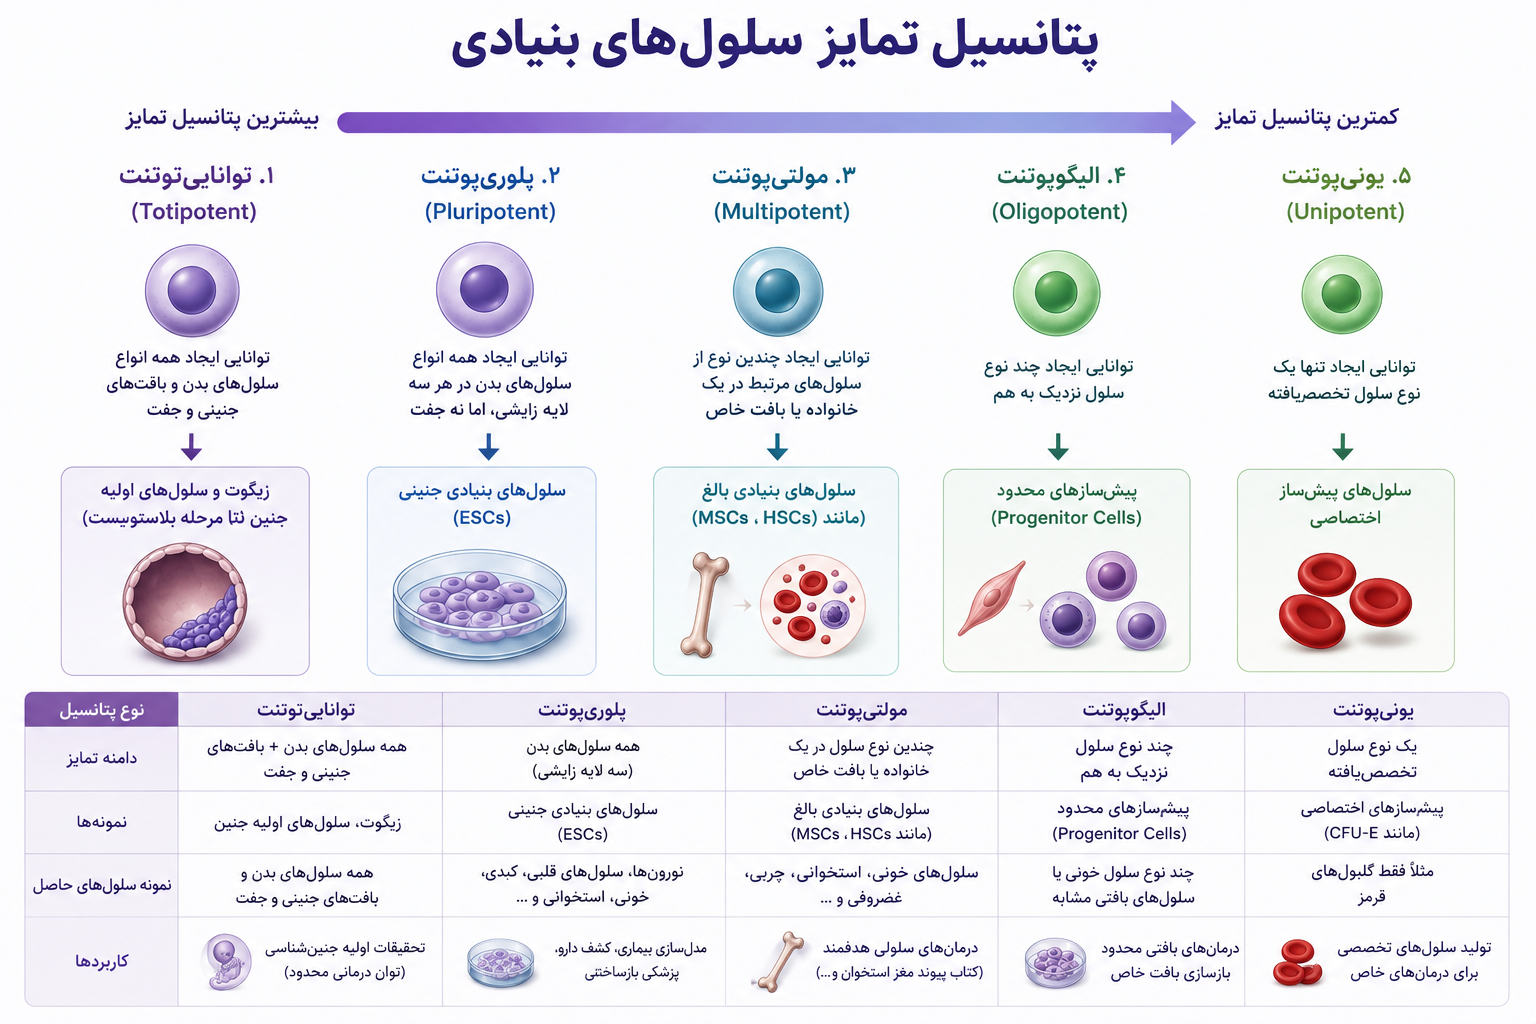
یکی از روشهای اصلی طبقهبندی سلولها در زیستشناسی سلول بنیادی، بررسی Developmental Potency یا پتانسیل تکوینی و تمایزی آنها است. Potency بیان میکند که یک سلول تحت شرایط مناسب قادر به ایجاد چه گسترهای از دودمانهای سلولی است. بر اساس این ویژگی، سلولها به وضعیتهای همهتوان، پرتوان، چندتوان، کمتوان و تکتوان تقسیم میشوند. با حرکت از Totipotency به Unipotency، دامنه سرنوشتهای تکوینی قابل دسترس بهتدریج محدودتر میشود.
· همهتوان
Totipotency یا همهتوانی بالاترین سطح پتانسیل تکوینی است. در تعریف سختگیرانه، یک سلول همهتوان باید بهتنهایی ظرفیت ایجاد تمام بخشهای جنینی و خارججنینی مورد نیاز برای شکلگیری یک موجود کامل را داشته باشد. در پستانداران این ویژگی به زیگوت و برخی بلاستومرهای مراحل بسیار اولیه تکوین نسبت داده میشود. از نظر علمی بهتر است بهجای عبارت «سلول بنیادی همهتوان»، از اصطلاح سلول همهتوان مراحل اولیه جنینی استفاده شود، زیرا این سلولها لزوماً با تعریف متداول stem cell population که شامل خودنوزایی طولانیمدت است مطابقت ندارند. همچنین مطالعات جدید تأکید میکنند که اصطلاح Totipotency نباید صرفاً برای سلولی به کار رود که قادر به تولید چند دودمان جنینی و خارججنینی است؛ معیار سختگیرانه آن توان ایجاد یک ارگانیسم کامل است.
· پرتوان
Pluripotent Cells یا سلولهای پرتوان قادرند مشتقات هر سه لایه زایای اولیه شامل اکتودرم، مزودرم و اندودرم را ایجاد کنند و در نتیجه ظرفیت ایجاد تقریباً تمام انواع سلولهای سوماتیک بدن را دارند. با این حال، برخلاف سلولهای همهتوان، توان ایجاد بهتنهایی تمام ساختارهای لازم برای تشکیل یک موجود کامل را ندارند.
دو گروه شناختهشده سلولهای بنیادی پرتوان شامل Embryonic Stem Cells یا ESCs و Induced Pluripotent Stem Cells یا iPSCs هستند. ESCهای کلاسیک انسانی از سلولهای مرتبط با توده داخلی بلاستوسیست در مرحله پیش از لانهگزینی ایجاد میشوند، در حالی که iPSCها از طریق بازبرنامهریزی سلولهای سوماتیک به وضعیت پرتوان تولید میشوند. جزئیات منشأ، جداسازی، مارکرها، شرایط کشت، ویژگیهای زیستی و کاربردهای هر یک در درسهای اختصاصی بررسی خواهد شد.
نکته مهم آن است که بیان تعدادی از ژنها یا مارکرهای مربوط به وضعیت تمایزنیافته بهتنهایی برای اثبات pluripotency کافی نیست. بر اساس استانداردهای ISSCR، پرتوانی یک خصوصیت عملکردی است و باید توانایی ایجاد مشتقات هر سه لایه زایا بهطور تجربی نشان داده شود.
· چندتوان
Multipotent Stem Cells یا سلولهای بنیادی چندتوان دامنه تمایزی محدودتری نسبت به سلولهای پرتوان دارند و معمولاً قادرند چندین نوع سلول مرتبط را در یک بافت یا خانواده تکوینی مشخص ایجاد کنند. نمونه کلاسیک آن Hematopoietic Stem Cell است که میتواند دودمانهای اصلی سلولهای خونی را ایجاد کند، اما در شرایط فیزیولوژیک طبیعی قادر به تشکیل تمام سلولهای بدن نیست.
بخش قابل توجهی از سلولهای بنیادی بافتی بدن در گروه Multipotent یا در سطوح محدودتر potency قرار میگیرند. توان تمایزی این سلولها ارتباط نزدیکی با بافت محل استقرار و وظیفه فیزیولوژیک آنها دارد.
· کمتوان
Oligopotent Cells یا سلولهای کمتوان قادر به ایجاد تعداد محدودی از دودمانهای نزدیک و مرتبط هستند و نسبت به سلولهای چندتوان در مرحله محدودتری از سلسلهمراتب تکوینی قرار دارند. اصطلاح oligopotent در بسیاری از موارد بیشتر برای سلولهای پیشساز به کار میرود تا سلولهای بنیادی دارای خودنوزایی طولانیمدت.
برای مثال، برخی پیشسازهای خونساز پس از خروج از سطح HSC تنها قادر به ایجاد مجموعه محدودی از دودمانهای خونی هستند. بنابراین، هنگام استفاده از اصطلاح oligopotent باید میان Stem Cell و Progenitor Cell تمایز قائل شد.
· تکتوان
Unipotent Stem Cells یا سلولهای بنیادی تکتوان دارای توان خودنوزایی هستند، اما خروجی تمایزی آنها به یک دودمان اصلی محدود میشود. محدود بودن پتانسیل تمایزی به معنی پایین بودن توان خودنوزایی نیست. یک سلول بنیادی تکتوان میتواند برای مدت طولانی جمعیت خود را حفظ کند، در حالی که تنها یک نوع اصلی از سلولهای تخصصیافته را ایجاد میکند.
سلولهای بنیادی اسپرماتوگونی از نمونههایی هستند که معمولاً در چارچوب سلولهای بنیادی با توان تمایزی بسیار محدود مطرح میشوند. ویژگی اصلی که یک سلول بنیادی تکتوان را از یک سلول کاملاً تمایزیافته متمایز میکند، حفظ ظرفیت خودنوزایی در کنار توان تولید سلولهای همان دودمان است.
۸. تفاوت سلول بنیادی و سلول پیشساز
اصطلاحهای Stem Cell و Progenitor Cell گاهی به اشتباه بهجای یکدیگر استفاده میشوند. هر دو گروه میتوانند سلولهای تمایزیافته تولید کنند، اما معمولاً تفاوت اصلی آنها در میزان و مدت خودنوزایی و گستره پتانسیل تمایزی است.
سلول بنیادی واقعی معمولاً توانایی حفظ طولانیمدت جمعیت خود را در کنار تولید سلولهای تمایزیافته دارد. در مقابل، Progenitor Cell اغلب در مرحله متعهدتری از سلسلهمراتب تکوینی قرار گرفته، پتانسیل تمایزی محدودتری دارد و خودنوزایی آن معمولاً محدودتر از سلول بنیادی است. بسیاری از progenitorها ممکن است سرعت تکثیر بسیار بالایی داشته باشند؛ بنابراین بالا بودن proliferation نباید با stemness اشتباه گرفته شود.
مدل کلاسیک یک سلسلهمراتب سلولی را میتوان بهصورت کلی به شکل «سلول بنیادی، سلول پیشساز، پیشساز متعهد و سلول تمایزیافته» تصور کرد. با این حال، مطالعات جدید نشان دادهاند که در برخی بافتها این سلسلهمراتب کاملاً خطی نیست و سلولها ممکن است در پاسخ به آسیب یا تغییر niche بین برخی وضعیتها جابهجا شوند. به همین دلیل، مدل امروزی بیشتر یک شبکه پویا از Cell States و Cell Fates است تا یک مسیر کاملاً یکطرفه.
۹. چگونه ثابت میشود یک سلول بنیادی است؟
یکی از اصول مهم زیستشناسی سلول بنیادی این است که Stemness یک ویژگی عملکردی است و صرف مشاهده یک مارکر برای اثبات آن کافی نیست. روش ارزیابی یک سلول بنیادی به نوع سلول و سیستم زیستی مورد مطالعه بستگی دارد.
در سلولهای بنیادی بافتی، شواهد قوی معمولاً شامل نشان دادن توانایی خودنوزایی طولانیمدت و تولید دودمانهای مربوط به بافت است. روشهایی مانند Lineage Tracing در داخل موجود زنده، بررسی کلونال، آزمایشهای بازسازی بافت و در برخی سیستمها پیوند و پیوندهای متوالی میتوانند برای بررسی این خصوصیات مورد استفاده قرار گیرند. Lineage tracing بهویژه امکان بررسی سرنوشت واقعی یک سلول و فرزندان آن را در محیط طبیعی بافت فراهم میکند.
در سلولهای بنیادی پرتوان نیز بیان فاکتورهای مرتبط با وضعیت تمایزنیافته مفید است، اما بهتنهایی pluripotency را اثبات نمیکند. استانداردهای ISSCR توصیه میکنند که هویت، وضعیت سلولی، توان تمایز، پایداری ژنتیکی و کیفیت کشت متناسب با نوع مطالعه بررسی شوند. برای سلولهای پرتوان، توان تمایز به مشتقات سه لایه زایا باید بهصورت عملکردی نشان داده شود.
این موضوع اهمیت زیادی دارد، زیرا در زیستشناسی سلول بنیادی نباید هر جمعیت سلولی که تعدادی از مارکرهای رایج را بیان میکند یا در شرایط کشت تکثیر میشود، بدون شواهد کافی بهعنوان «سلول بنیادی» معرفی شود.
۱۰. ناهمگنی و پویایی جمعیتهای سلول بنیادی
یکی از مفاهیمی که در سالهای اخیر اهمیت بیشتری پیدا کرده است، Heterogeneity یا ناهمگنی سلولهای بنیادی است. یک جمعیت که در نگاه اولیه بهعنوان یک نوع سلول بنیادی شناخته میشود، الزاماً از سلولهایی کاملاً مشابه تشکیل نشده است. حتی در یک niche واحد ممکن است زیرجمعیتهایی با وضعیت تکثیری، متابولیک، اپیژنتیکی یا ظرفیت تمایزی متفاوت وجود داشته باشند.
توسعه فناوریهایی مانند Single-cell RNA Sequencing، Single-cell Multi-omics، Spatial Transcriptomics و Lineage Tracing امکان بررسی این تفاوتها را با دقت بسیار بیشتری فراهم کرده است. این مطالعات نشان دادهاند که سلولهای بنیادی اغلب بین وضعیتهای مختلف سکون، فعالشدن، خودنوزایی، تعهد و تمایز حرکت میکنند و مرز میان این وضعیتها همیشه کاملاً مشخص نیست.
در نتیجه، امروزه بهجای تصور یک «سلول بنیادی ایدهآل و ثابت»، بیشتر از مفهوم Stem Cell States استفاده میشود. یک سلول میتواند با حفظ هویت کلی خود در وضعیتهای عملکردی مختلف قرار گیرد و تغییر niche، سن، التهاب، متابولیسم یا آسیب بافتی میتواند احتمال ورود آن به هر یک از این وضعیتها را تغییر دهد.
۱۱. طبقهبندی کلی سلولهای بنیادی بر اساس منشأ
علاوه بر توان تمایزی، سلولهای بنیادی را میتوان بهصورت کلی بر اساس منشأ نیز دستهبندی کرد. سلولهای بنیادی جنینی از مراحل اولیه تکوین منشأ میگیرند و دارای ویژگی پرتوانی هستند. سلولهای بنیادی پرتوان القاشده از بازبرنامهریزی سلولهای سوماتیک ایجاد میشوند و بسیاری از ویژگیهای سلولهای پرتوان را کسب میکنند.
گروه دیگری، سلولهای بنیادی بافتی یا Tissue Stem Cells هستند که در بافتهای مختلف جنینی، پس از تولد و بالغ حضور دارند و مسئول حفظ یا بازسازی یک یا چند دودمان بافتی مشخص هستند. سلولهای بنیادی خونساز، عصبی، عضلانی و برخی سلولهای بنیادی اپیتلیالی نمونههایی از این گروه هستند.
همچنین از بافتهای مرتبط با تولد مانند بند ناف، خون بند ناف، جفت و سایر بافتهای پریناتال جمعیتهای مختلف سلولی قابل جداسازی هستند. با این حال، صرف منشأ گرفتن یک سلول از این بافتها به معنی stem cell بودن آن نیست و ویژگی بنیادی باید بر اساس معیارهای مناسب اثبات شود. استانداردسازی هویت و Characterization سلولهای بنیادی انسانی یکی از محورهای اصلی استانداردهای جدید ISSCR برای افزایش قابلیت تکرارپذیری مطالعات است.
جمعبندی
سلولهای بنیادی را نمیتوان صرفاً بر اساس توان تکثیر یا بیان یک مجموعه محدود از مارکرها تعریف کرد. اساس مفهوم سلول بنیادی بر خودنوزایی و توان تولید سلولهای تمایزیافته استوار است، اما عملکرد واقعی این سلولها تحت تأثیر مجموعهای از عوامل شامل وضعیت تکوینی، تنظیمات ژنتیکی و اپیژنتیکی، متابولیسم، ریزمحیط بافت، سکون و فعالشدن، پلاستیسیته و پاسخ به آسیب قرار دارد.
در دیدگاه امروزی، بنیادینگی یک وضعیت پویا است و بسیاری از جمعیتهای سلول بنیادی از زیرجمعیتهایی با وضعیتهای عملکردی متفاوت تشکیل شدهاند. همچنین سلسلهمراتب تمایزی در همه بافتها یک مسیر کاملاً ثابت و یکطرفه نیست و در برخی شرایط، بهویژه هنگام آسیب و بازسازی، امکان تغییر وضعیت یا سرنوشت سلولی وجود دارد.
شناخت صحیح تفاوت میان Self-renewal، Proliferation، Differentiation، Potency، Plasticity، Reprogramming، Quiescence، Stem Cell Niche و Progenitor Cells پایه لازم برای مطالعه انواع مختلف سلولهای بنیادی است. در درسهای بعدی، هر یک از جمعیتهای مهم سلول بنیادی از نظر منشأ، ویژگیهای زیستی، مارکرهای شناسایی، روشهای جداسازی و کشت، ظرفیت تمایزی، کاربردهای پژوهشی و درمانی، محدودیتها و ملاحظات ایمنی و اخلاقی بهصورت مستقل بررسی خواهند شد.
منابع:
1. Beumer J, Clevers H. Hallmarks of stemness in mammalian tissues. Cell Stem Cell. 2024 Jan 4;31(1):7-24. 10.1016/j.stem.2023.12.006
2. Cain TL, Derecka M, McKinney-Freeman S. The role of the haematopoietic stem cell niche in development and ageing. Nature Reviews Molecular Cell Biology. 2025 Jan;26(1):32-50. https://doi.org/10.1038/s41580-024-00770-8
3. Rettkowski J, Cabezas-Wallscheid N. Regulation of hematopoietic stem cell dormancy and quiescence: insights into regeneration and disease. Annual Review of Cell and Developmental Biology. 2025 Oct 1;41(1):231-58. https://doi.org/10.1146/annurev-cellbio-101323-023806
4. Lovell-Badge R, Anthony E, Barker RA, Bubela T, Brivanlou AH, Carpenter M, Charo RA, Clark A, Clayton E, Cong Y, Daley GQ. ISSCR guidelines for stem cell research and clinical translation: the 2021 update. Stem cell reports. 2021 Jun 8;16(6):1398-408. 10.1016/j.stemcr.2021.05.012