Section outline
-
مقدمه
سلولهای بنیادی جنینی یا Embryonic Stem Cells (ESCs) گروهی از سلولهای بنیادی پرتوان هستند که عمدتاً از سلولهای توده داخلی بلاستوسیست در مراحل اولیه تکوین جنین به دست میآیند. این سلولها به دلیل برخورداری همزمان از دو ویژگی اساسی، یعنی خودنوزایی (Self-renewal) و پرتوانی (Pluripotency)، جایگاه ویژهای در زیستشناسی تکوینی و پزشکی بازساختی دارند. خودنوزایی به توانایی سلول در انجام تقسیمات متعدد همراه با حفظ وضعیت بنیادی اشاره دارد، در حالی که پرتوانی نشاندهنده قابلیت تمایز سلول به انواع بسیار متنوع سلولی مشتق از سه لایه زایای اکتودرم، مزودرم و اندودرم است. به همین دلیل ESCها یکی از مهمترین سیستمهای آزمایشگاهی برای مطالعه تکوین طبیعی انسان، بررسی مکانیسم بیماریها، غربالگری داروها، مهندسی بافت و توسعه درمانهای مبتنی بر سلول محسوب میشوند.
ESCها را نباید با سلولهای همهتوان (Totipotent) یکسان دانست. سلولهای همهتوان، مانند زیگوت و برخی بلاستومرهای بسیار اولیه، علاوه بر ایجاد سلولهای بدن جنین میتوانند در تشکیل بافتهای خارججنینی مورد نیاز برای تکامل کامل جنین نیز مشارکت کنند. در مقابل، ESCهای کشتشده اگرچه قادر به ایجاد مشتقات هر سه لایه زایا هستند، بهطور طبیعی توانایی ایجاد یک ارگانیسم کامل همراه با تمام بافتهای پشتیبان خارججنینی را ندارند. بنابراین اصطلاح علمی صحیح برای ESCها، سلولهای pluripotent است.1. تاریخچه سلولهای بنیادی جنینی
ریشه مطالعات ESCها به بررسی تراتوما و تراتوکارسینوما در نیمه دوم قرن بیستم بازمیگردد. پژوهشگران در بررسی این تومورها متوجه وجود سلولهایی شدند که میتوانستند برای مدت طولانی تکثیر شوند و همزمان انواع متفاوتی از بافتها را ایجاد کنند. این سلولها که بعدها Embryonal Carcinoma Cells نامیده شدند، نقش مهمی در شکلگیری مفهوم پرتوانی داشتند، هرچند منشأ توموری و ناپایداری ژنتیکی آنها کاربردشان را محدود میکرد.
نقطه عطف اصلی در سال 1981 رخ داد؛ زمانی که دو گروه تحقیقاتی بهطور مستقل موفق شدند سلولهای پرتوان را از جنین موش جدا کرده و در محیط آزمایشگاه برای مدت طولانی کشت دهند Martin Evans و Matthew Kaufman سلولهای حاصل از توده داخلی بلاستوسیست موش را در شرایطی نگهداری کردند که توانایی تکثیر و تمایز خود را حفظ میکردند. تقریباً همزمان، Gail Martin نیز سلولهای مشابهی را جداسازی کرد و اصطلاح Embryonic Stem Cellرا برای توصیف آنها به کار برد. توسعه ESCهای موش بعدها امکان تولید حیوانات تراریخته و روشهای Gene Targeting را فراهم کرد و تحول بزرگی در زیستشناسی مولکولی و ژنتیک عملکردی ایجاد نمود.
مرحله مهم بعدی در سال 1998 اتفاق افتاد، زمانی که James Thomson و همکاران برای نخستین بار خطوط پایدار Human Embryonic Stem Cells (hESCs) را از بلاستوسیستهای انسانی ایجاد کردند. این سلولها قابلیت تکثیر طولانیمدت در شرایط آزمایشگاهی را داشتند و میتوانستند به سلولهای مشتق از هر سه لایه زایای جنینی تمایز پیدا کنند. این دستاورد زمینه توسعه بخش بزرگی از تحقیقات امروزی در حوزه پزشکی بازساختی، مدلسازی بیماریها و درمانهای مبتنی بر سلولهای پرتوان را فراهم ساخت.
2. منشأ جنینی ESCها
پس از لقاح اسپرم و اووسیت، زیگوت تشکیل میشود و طی تقسیمات متوالی موسوم به Cleavage به مراحل دو سلولی، چهار سلولی و هشت سلولی میرسد. ادامه تقسیمات منجر به تشکیل مورولا و سپس بلاستوسیست میشود. بلاستوسیست انسان یک ساختار پیچیده پیش از لانهگزینی است که از بخشهایی شامل Trophectoderm، Inner Cell Mass و Blastocoel تشکیل شده است. تروفکتودرم لایه خارجی بلاستوسیست را تشکیل میدهد و در مراحل بعدی عمدتاً در ایجاد بخش جنینی جفت و برخی ساختارهای خارججنینی مشارکت میکند، در حالی که توده داخلی سلولی یا Inner Cell Mass (ICM) حاوی سلولهایی است که بخش عمده جنین از آنها منشأ میگیرد.
ESC های انسانی کلاسیک عمدتاً با جداسازی سلولهای ICM از بلاستوسیستهای مرحله پیش از لانهگزینی ایجاد میشوند. با این حال، باید توجه داشت که ESC کشتشده در محیط آزمایشگاه دقیقاً معادل سلول ICM درون جنین نیست. سلولها پس از جداسازی و قرار گرفتن در شرایط کشت، تحت تأثیر محیط، فاکتورهای رشد، ترکیبات ماتریکس خارج سلولی و شرایط متابولیک قرار میگیرند و به یک وضعیت پایدار پرتوان سازگار با محیط آزمایشگاهی میرسند. بنابراین بین وضعیت مولکولی سلولهای ICM داخل جنین و ESCهای حاصل از کشت تفاوتهایی در بیان ژن، وضعیت اپیژنتیک، متابولیسم و مسیرهای پیامرسانی وجود دارد.
۳. منابع سلولهای بنیادی جنینی
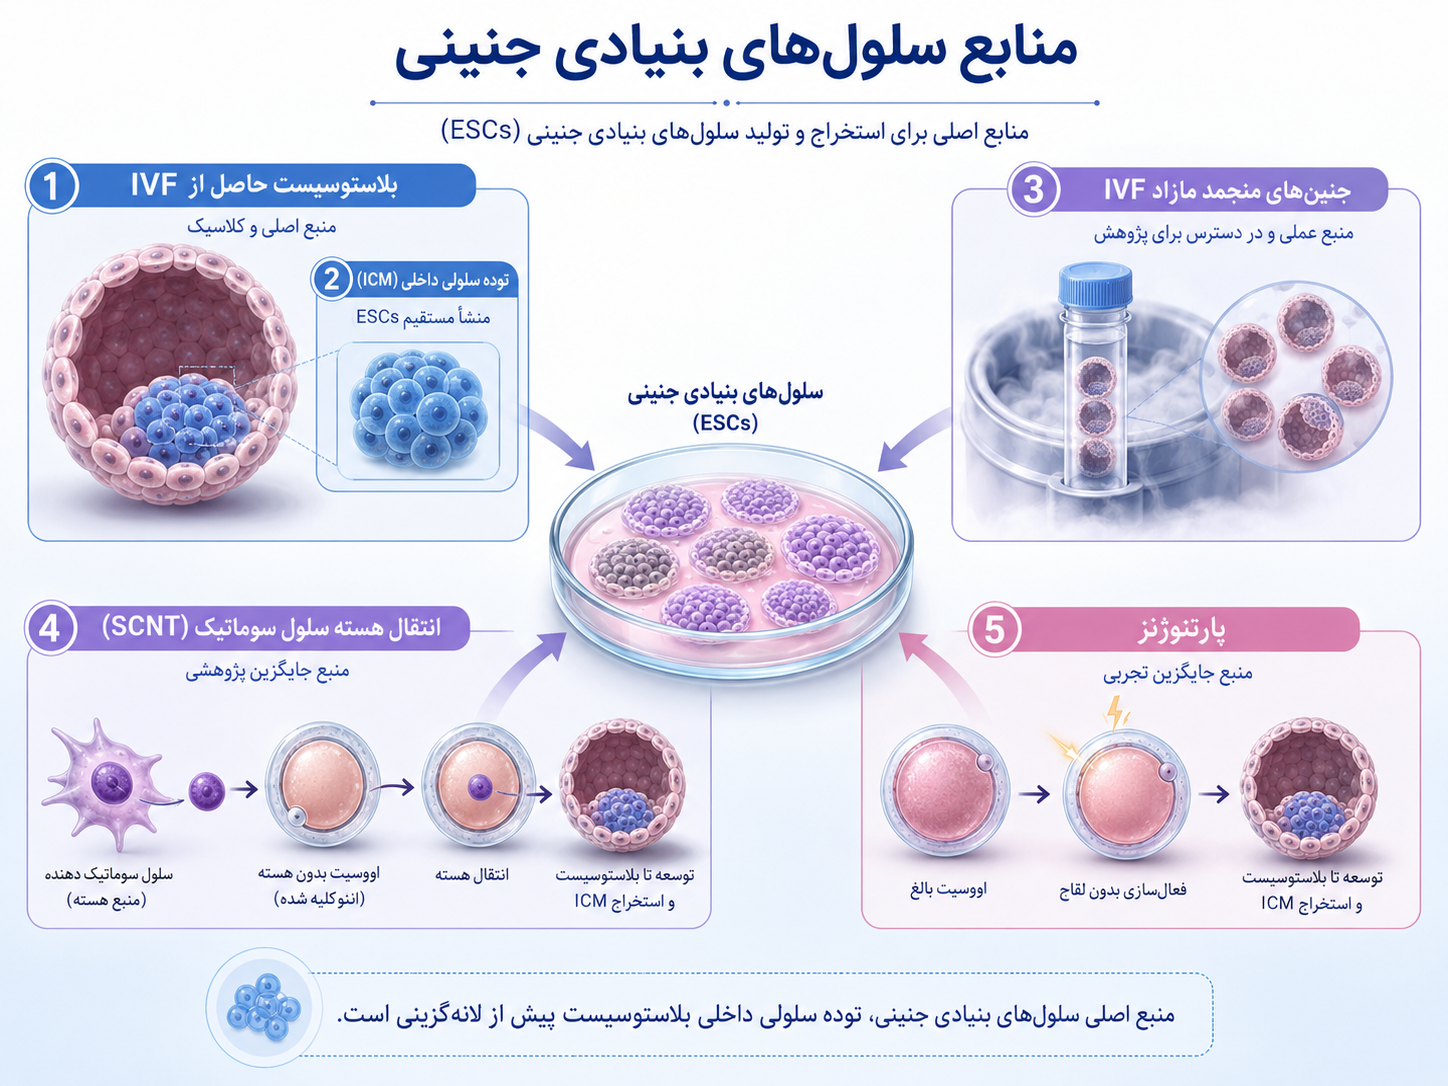
مهمترین منبع ایجاد خطوط hESC، بلاستوسیستهای مازاد حاصل از روشهای کمکباروری مانند In Vitro Fertilization (IVF) است. در مراکز درمان ناباروری معمولاً تعداد بیشتری جنین نسبت به تعداد مورد نیاز برای انتقال به رحم تولید میشود. بخشی از این جنینها برای استفاده آینده منجمد میشوند و در صورتی که صاحبان جنین دیگر به آنها نیاز نداشته باشند، ممکن است با رضایت آگاهانه برای اهداف تحقیقاتی اهدا شوند. چنین جنینهایی یکی از مهمترین منابع ایجاد خطوط hESC در تحقیقات زیستپزشکی بودهاند.
در برخی شرایط، جنینهایی که در جریان Preimplantation Genetic Testing (PGT) دارای یک اختلال ژنتیکی مشخص تشخیص داده شده و برای انتقال انتخاب نشدهاند نیز میتوانند، در چارچوب مقررات اخلاقی و قانونی، برای ایجاد خطوط ESC اختصاصی بیماری مورد استفاده قرار گیرند. این خطوط ابزار ارزشمندی برای بررسی مراحل اولیه بروز بیماریهای ژنتیکی، مطالعه اثر جهشها بر تکوین سلولی و ارزیابی روشهای درمانی محسوب میشوند.
روشهای دیگری نیز برای تولید سلولهای بنیادی پرتوان با منشأ جنینی مورد بررسی قرار گرفتهاند. یکی از مهمترین آنها Somatic Cell Nuclear Transfer (SCNT) است. در این روش، هسته یک سلول سوماتیک به داخل اووسیتی که هسته آن خارج شده است منتقل میشود. پس از فعالسازی، سلول بازسازیشده میتواند تقسیم شده و ساختاری شبیه بلاستوسیست ایجاد کند که از آن میتوان سلولهای بنیادی پرتوان استخراج کرد. اهمیت این روش در آن است که ژنوم هستهای ESC حاصل، تقریباً مشابه فرد اهداکننده سلول سوماتیک خواهد بود. با این حال، پیچیدگی فنی، نیاز به اووسیت انسانی و ملاحظات اخلاقی، استفاده گسترده از این روش را محدود کرده است.
نوع دیگری از سلولهای پرتوان، سلولهای بنیادی حاصل از Parthenogenesis هستند. در این روش اووسیت بدون مشارکت اسپرم بهطور مصنوعی فعال میشود و شروع به تقسیم میکند. از ساختارهای حاصل میتوان سلولهای بنیادی پرتوان استخراج کرد. این سلولها به دلیل الگوی خاص ژنومی و اختلالات مربوط به Genomic Imprinting ویژگیهای متفاوتی با ESCهای حاصل از لقاح طبیعی دارند و کاربرد آنها عمدتاً تحقیقاتی است.
۴. روشهای جداسازی ESCها
یکی از روشهای کلاسیک جداسازی ICM از بلاستوسیست، Immunosurgery است. در این روش ابتدا آنتیبادیهایی علیه سلولهای سطح خارجی بلاستوسیست مورد استفاده قرار میگیرند و سپس سیستم Complement موجب تخریب سلولهای Trophectoderm میشود. پس از حذف این سلولها، توده داخلی سلولی باقی میماند و میتواند برای ایجاد یک خط ESC مورد استفاده قرار گیرد. این روش در مطالعات اولیه بسیار متداول بود، اما استفاده از آنتیبادیها و ترکیبات دارای منشأ حیوانی باعث شده است که برای تولید خطوط مناسب کاربرد بالینی، روشهای جایگزین مطلوبتر باشند.
در روش Mechanical Dissection، توده داخلی سلولی با استفاده از ابزارهای ظریف و تکنیکهای میکرومانیپولاسیون بهصورت مکانیکی از سایر بخشهای بلاستوسیست جدا میشود. مزیت این روش کاهش تماس سلول با مواد حیوانی است و به همین دلیل امکان استفاده از آن در سیستمهای Xeno-free وجود دارد. با این حال، روش مکانیکی وابستگی زیادی به مهارت اپراتور دارد و انجام صحیح آن نیازمند تجهیزات و تجربه مناسب است.
استفاده از Laser-assisted Isolation نیز امکان جداسازی دقیق بخش مورد نظر بلاستوسیست را فراهم کرده است. سیستمهای لیزری مشابه تجهیزات مورد استفاده در آزمایشگاههای IVF و PGT میتوانند برای جدا کردن ICM از تروفکتودرم مورد استفاده قرار گیرند. این روش از دقت بالایی برخوردار است و قابلیت استانداردسازی مناسبی دارد، اما نیازمند تجهیزات تخصصی است. همچنین در برخی پروتکلها از روشWhole blastocyst Culture استفاده میشود که در آن بلاستوسیست بدون جداسازی اولیه ICM روی یک سطح مناسب کشت داده شده و پس از ایجاد outgrowth ، کلونیهای دارای ویژگیهای ESC انتخاب و تکثیر میشوند.
۵. ویژگی خودنوزایی و پرتوانی
دو ویژگی اصلی که هویت زیستی ESCها را تعیین میکنند، خودنوزایی و پرتوانی هستند. خودنوزایی به این معنا است که سلول میتواند برای تعداد زیادی نسل تقسیم شود و در عین حال ویژگیهای سلول بنیادی خود را حفظ کند. این مفهوم با تکثیر ساده متفاوت است؛ زیرا بسیاری از سلولهای سوماتیک قادر به تقسیم هستند، اما با افزایش تعداد تقسیمات وارد مرحله پیری سلولی میشوند یا ویژگیهای عملکردی خود را تغییر میدهند. ESCها در شرایط مناسب آزمایشگاهی میتوانند تعداد بسیار زیادی تقسیم انجام دهند و همچنان در وضعیت پرتوان باقی بمانند.
پرتوانی به توانایی ESC برای ایجاد سلولهای متعلق به سه لایه اصلی زایای جنینی اشاره دارد. اکتودرم منشأ بسیاری از سلولهای سیستم عصبی مرکزی و محیطی، سلولهای اپیدرمی و برخی ساختارهای حسی است. مزودرم منشأ سلولهای عضلانی، استخوانی، غضروفی، قلبی، عروقی و بخش عمده سیستم خونساز است. اندودرم نیز در ایجاد سلولهای کبد، پانکراس، دستگاه گوارش و بخشهایی از دستگاه تنفسی نقش دارد. بنابراین یک ESC واقعی باید در شرایط مناسب توانایی ورود به هر سه مسیر تکوینی را داشته باشد.
۶. ویژگیهای مورفولوژیک ESCها
سلولهای بنیادی جنینی انسانی در شرایط کشت استاندارد معمولاً کلونیهای فشردهای ایجاد میکنند که دارای مرز نسبتاً مشخص هستند. سلولهای تمایزنیافته hESC معمولاً اندازه کوچکی دارند و نسبت حجم هسته به سیتوپلاسم در آنها بالا است. هسته بزرگ، وجود نوکلئولهای برجسته و مقدار نسبتاً کم سیتوپلاسم از ویژگیهای کلاسیک این سلولها محسوب میشود. سلولها در داخل کلونی تماس نزدیک با یکدیگر دارند و بخش مرکزی کلونی معمولاً یکنواختتر به نظر میرسد.
تغییر در شکل کلونی میتواند نشانه آغاز تمایز باشد. صاف شدن سلولها، افزایش حجم سیتوپلاسم، کاهش نسبت هسته به سیتوپلاسم، از بین رفتن مرز مشخص کلونی و ظهور سلولهایی با اشکال متفاوت ممکن است نشاندهنده Spontaneous Differentiation باشد. با این حال، ارزیابی مورفولوژی بهتنهایی برای تعیین هویت یا پرتوانی ESC کافی نیست و باید همراه با آزمایشهای مولکولی و عملکردی انجام شود.
مارکرهای شناسایی ESC
یکی از مهمترین روشهای شناسایی ESCهای تمایزنیافته بررسی بیان فاکتورهای رونویسی مرتبط با شبکه پرتوانی است. سه عامل OCT4، SOX2 و NANOG نقش مرکزی در حفظ وضعیت پرتوان دارند و شبکهای تنظیمی را تشکیل میدهند که بیان تعداد زیادی از ژنهای مرتبط با خودنوزایی و مهار تمایز را کنترل میکند. OCT4 که توسط ژن POU5F1 کد میشود، یکی از مهمترین عوامل حفظ هویت سلول پرتوان است و تغییر قابلتوجه در سطح بیان آن میتواند سلول را به سمت مسیرهای تمایزی سوق دهد. SOX2 نیز در تعامل با OCT4 بسیاری از enhancerها و promoterهای ژنهای مرتبط با pluripotency را تنظیم میکند و NANOG در تثبیت وضعیت تمایزنیافته نقش مهمی دارد.
علاوه بر مارکرهای داخل سلولی، چندین آنتیژن سطح سلولی نیز برای شناسایی hESCها مورد استفاده قرار میگیرند. SSEA-3، SSEA-4، TRA-1-60 و TRA-1-81 از شناختهشدهترین مارکرهای ESC انسانی هستند. فعالیت بالای Alkaline Phosphatase (ALP) نیز یکی دیگر از ویژگیهای رایج سلولهای بنیادی پرتوان تمایزنیافته محسوب میشود. با این حال، هیچیک از این مارکرها بهتنهایی اثباتکننده پرتوانی نیستند. در استانداردهای جدید پژوهش در زمینه سلولهای بنیادی تأکید میشود که بیان OCT4، NANOG یا سایر مارکرها تنها نشاندهنده وضعیت تمایزنیافته سلول است و پرتوانی واقعی باید با آزمایشهای عملکردی تمایز اثبات شود.
ارزیابی و Characterization سلولهای ESC
شناسایی صحیح یک خط ESC باید بر اساس مجموعهای از بررسیهای مورفولوژیک، مولکولی، ژنتیکی و عملکردی انجام شود. مشاهده مورفولوژی کلونی اولین مرحله است، اما در ادامه معمولاً از روشهایی مانند Immunocytochemistry، Immunofluorescence و Flow Cytometry برای ارزیابی بیان مارکرهایی مانند OCT4، SOX2، NANOG، SSEA-4، TRA-1-60 و TRA-1-81 استفاده میشود. Flow Cytometry این مزیت را دارد که امکان تعیین درصد سلولهای بیانکننده هر مارکر را در یک جمعیت سلولی فراهم میکند.
بررسی بیان ژن با روشهایی مانند RT-qPCR نیز برای ارزیابی شبکه ژنی مرتبط با پرتوانی استفاده میشود. با این وجود، اثبات قطعی pluripotency مستلزم نشان دادن توانایی سلولها در تمایز به مشتقات هر سه لایه زایای جنینی است. برای این منظور میتوان ESCها را تحت پروتکلهای تمایزی مشخص قرار داده و سپس ظهور مارکرهای اختصاصی اکتودرم، مزودرم و اندودرم را بررسی کرد. مارکرهایی مانند PAX6 و SOX1 میتوانند برای مسیرهای اکتودرمی، Brachyury و MIXL1 برای مزودرم و SOX17 و FOXA2 برای اندودرم مورد استفاده قرار گیرند.
در گذشته Teratoma Assay یکی از روشهای مرسوم ارزیابی pluripotency بود. در این آزمایش، سلولهای بنیادی پرتوان به حیوانات دارای نقص ایمنی تزریق میشدند و تشکیل تودهای شامل بافتهای مشتق از سه لایه زایای جنینی بهعنوان شواهد پرتوانی در نظر گرفته میشد. امروزه، به دلیل ملاحظات مربوط به استفاده از حیوانات و وجود روشهای استانداردتر تمایز در شرایط in vitro، انجام Teratoma Assay برای Characterization روتین یک خط سلولی الزام محسوب نمیشود.
۷. کنترل کیفیت و پایداری ژنتیکی
یکی از مسائل مهم در کار با ESCها، کنترل هویت و پایداری ژنتیکی آنها در طول کشت است. ESCها ممکن است برای ماهها یا سالها در محیط آزمایشگاه تکثیر شوند و این کشت طولانیمدت میتواند زمینه انتخاب کلونهایی را فراهم کند که دارای تغییرات کروموزومی یا ژنتیکی هستند و از مزیت تکثیری برخوردارند. در نتیجه، انجام بررسیهای دورهای ژنتیکی برای خطوط پرتوان اهمیت زیادی دارد.
روش کلاسیک ارزیابی تعداد و ساختار کروموزومها Karyotyping است. روشهای دقیقتر مانند Chromosomal Microarray، SNP Array و تکنیکهای مبتنی بر Sequencing نیز میتوانند تغییرات کوچکتر ژنتیکی را شناسایی کنند. برای اطمینان از هویت یک خط سلولی انسانی نیز معمولاً از Short Tandem Repeat (STR) Profiling استفاده میشود. بررسی آلودگی به Mycoplasma و سایر عوامل میکروبی نیز بخش ضروری کنترل کیفیت کشت ESC محسوب میشود، زیرا آلودگیهای مزمن ممکن است بدون ایجاد تغییر ظاهری واضح، متابولیسم، رشد و رفتار سلول را بهشدت تغییر دهند.
۸. شرایط کشت ESCها
در نخستین سیستمهای کشت hESC، سلولها روی لایهای از Mouse Embryonic Fibroblasts (MEFs) رشد داده میشدند. این سلولهای feeder با تولید فاکتورهای رشد، مولکولهای ماتریکس خارج سلولی و سایر عوامل محلول به حفظ وضعیت تمایزنیافته ESC کمک میکردند. اگرچه این روش نقش مهمی در توسعه اولیه hESC داشت، وجود سلولها و ترکیبات حیوانی خطر انتقال عوامل ناشناخته حیوانی و ایجاد پاسخهای ایمنی را مطرح میکرد و برای کاربردهای بالینی مطلوب نبود.
به همین دلیل، سیستمهای جدید به سمت محیطهای Feeder-free، Serum-free، Xeno-free و Chemically Defined حرکت کردهاند. در این سیستمها از ترکیبات مشخص و استانداردشده استفاده میشود و پروتئینهایی مانند Vitronectin یا انواع خاص Laminin میتوانند بهعنوان substrate برای چسبیدن سلولها به کار روند. محیطهایی مانند Essential 8 نیز با هدف کاهش تعداد اجزای ناشناخته و افزایش تکرارپذیری کشت سلولهای بنیادی پرتوان توسعه یافتهاند. برای تولید محصولات سلولی مورد استفاده در انسان، استفاده از شرایط GMP-compatible و مواد اولیه با کیفیت بالینی اهمیت اساسی دارد.
۹. مسیرهای مولکولی حفظ پرتوانی
حفظ وضعیت پرتوان در hESCها حاصل تعامل پیچیده بین شبکه فاکتورهای رونویسی داخل سلولی و سیگنالهای دریافتشده از محیط است. FGF2 signaling یکی از مسیرهای مهم در حفظ خودنوزایی hESCهای کلاسیک محسوب میشود و بسیاری از محیطهای کشت این سلولها حاوی FGF2 هستند. مسیر TGF-β/Activin/Nodal نیز در حفظ بیان ژنهای مرتبط با pluripotency، بهویژه NANOG، نقش مهمی دارد.
مسیر PI3K/AKT در بقای سلولی، متابولیسم و رشد ESCها نقش دارد. مسیر WNT نیز یکی از تنظیمکنندههای مهم سرنوشت سلولی است، اما اثر آن به وضعیت تکوینی سلول، مقدار و مدت فعالسازی و سایر سیگنالهای موجود در محیط وابسته است. در برخی شرایط WNT میتواند در حفظ ویژگیهای بنیادی مشارکت کند، در حالی که در شرایط دیگر فعال شدن همین مسیر سلولها را به سمت تمایز، بهویژه مسیرهای مزودرمی، هدایت میکند. بنابراین عملکرد مسیرهای پیامرسانی در ESCها باید همواره در زمینه وضعیت تکوینی و شرایط کشت تفسیر شود.
۱۰. حالتهای مختلف پرتوانی
مطالعات جدید نشان دادهاند که pluripotency یک وضعیت واحد و ثابت نیست، بلکه سلولهای پرتوان میتوانند در وضعیتهای تکوینی متفاوتی قرار گیرند. سه وضعیت عمده تحت عنوان Naïve، Formative و Primed Pluripotency شناخته میشوند. Naïve pluripotency بیشتر مشابه وضعیت سلولهای epiblast در مراحل بسیار اولیه پیش از لانهگزینی است، در حالی که Primed pluripotency به مراحل تکوینی بعدی نزدیکتر بوده و سلولها آمادگی بیشتری برای ورود به مسیرهای تمایزی دارند. Formative pluripotencyنیز بهعنوان مرحله واسطی در گذار بین این دو وضعیت مطرح شده است.
بیشتر خطوط کلاسیک hESC که با روشهای متداول کشت تولید شدهاند، از نظر مولکولی و اپیژنتیکی به وضعیت Primed نزدیکتر هستند. در مقابل، mouse ESCهای کلاسیک خصوصیات بیشتری از Naïve pluripotency نشان میدهند. توسعه محیطهای کشت جدید امکان تولید و نگهداری hESCهای انسانی در وضعیتهای نزدیکتر به Naïve pluripotency را فراهم کرده است. بررسی این وضعیتهای متفاوت اهمیت زیادی برای شناخت مراحل اولیه تکوین انسان و بهینهسازی پروتکلهای تمایز دارد.
۱۱. تمایز سلولهای بنیادی جنینی
ESCها در صورت حذف سیگنالهای حفظکننده pluripotency میتوانند بهصورت خودبهخودی وارد مسیر تمایز شوند. یکی از روشهای کلاسیک برای القای تمایز، تشکیل ساختارهای سهبعدی موسوم به Embryoid Bodies (EBs) است. در این روش سلولهای پرتوان بهصورت aggregate در کنار یکدیگر قرار میگیرند و در اثر تعاملات سلول–سلول و ایجاد microenvironment سهبعدی، به انواع مختلف سلولی تمایز پیدا میکنند. با وجود ارزش تحقیقاتی بالای این روش، تمایز حاصل معمولاً ناهمگون است و کنترل دقیقی بر نوع سلول نهایی وجود ندارد.
در پزشکی بازساختی بیشتر از رویکرد Directed Differentiation استفاده میشود. اساس این روش تقلید مرحلهبهمرحله از سیگنالهای طبیعی embryogenesis است. در هر مرحله با استفاده از فاکتورهای رشد یا مهارکنندههای اختصاصی مسیرهای پیامرسانی، سلول به سمت یک lineage مشخص هدایت میشود. برای مثال، تولید سلولهای پانکراسی از ESC ابتدا با القای Definitive Endoderm آغاز میشود و سپس سلولها به مراحل Primitive Gut Tube، Pancreatic Progenitor، Endocrine Progenitor و در نهایت سلولهای شبه جزایر پانکراس هدایت میشوند. چنین رویکرد مرحلهای امکان تولید جمعیتهای سلولی خالصتر و استانداردتر را فراهم میکند.
۱۲. کاربردهای پژوهشی ESCها
یکی از مهمترین کاربردهای ESCها مطالعه تکوین انسان است. دسترسی مستقیم به بسیاری از مراحل اولیه embryogenesis انسان از نظر اخلاقی و فنی بسیار محدود است، در حالی که ESCها امکان بررسی فرایندهایی مانند تعیین سرنوشت سلولی، تشکیل لایههای زایا، تنظیم اپیژنتیک و نقش مسیرهای پیامرسانی در تکوین را در شرایط آزمایشگاهی فراهم میکنند. توسعه سیستمهای سهبعدی و مدلهای stem-cell-based embryo نیز در سالهای اخیر ظرفیت این سلولها را برای مطالعه مراحل پیچیدهتر تکوینی افزایش داده است.
ESCها همچنین ابزار ارزشمندی برای مدلسازی بیماریهای ژنتیکی هستند. خطوطی که دارای جهش مشخص هستند یا خطوطی که با استفاده از فناوریهایی مانند CRISPR/Cas9 ویرایش شدهاند، میتوانند برای بررسی اثر یک ژن خاص بر تکوین و عملکرد سلولی مورد استفاده قرار گیرند. ایجاد خطوط ایزوژنیک که تنها در یک تغییر ژنتیکی با یکدیگر تفاوت دارند، امکان بررسی مستقیم رابطه ژنوتیپ و فنوتیپ را فراهم میکند.
کاربرد مهم دیگر ESCها غربالگری دارویی و Toxicology است. از آنجا که میتوان تعداد بسیار زیادی سلول تخصصی نسبتاً استاندارد از ESC تولید کرد، این سلولها میتوانند برای ارزیابی اثر ترکیبات دارویی روی قلب، کبد، سیستم عصبی یا سایر بافتها مورد استفاده قرار گیرند. همچنین ESCها یکی از منابع مناسب برای تولید Organoids هستند. ارگانوئیدهای مغزی، شبکیهای، رودهای، کلیوی و سایر مدلهای سهبعدی مشتق از سلولهای پرتوان امروزه ابزار مهمی در زیستشناسی تکوینی و مدلسازی بیماری محسوب میشوند.
۱۳. کاربردهای ESC در پزشکی بازساختی
یکی از اهداف اصلی پزشکی بازساختی استفاده از ظرفیت نامحدود تکثیر ESCها برای تولید سلولهای تخصصی در مقیاس درمانی است. از ESCها میتوان پیشسازهای عصبی، نورونهای دوپامینرژیک، کاردیومیوسیتها، سلولهای اپیتلیوم رنگدانهای شبکیه، سلولهای پانکراسی، سلولهای اندوتلیال، سلولهای غضروفی و بسیاری از انواع دیگر سلول را تولید کرد. برخی از این محصولات وارد مطالعات بالینی انسانی شدهاند و نشان دادهاند که کاربرد بالینی مشتقات ESC دیگر صرفاً یک موضوع آزمایشگاهی نیست.
در بیماری پارکینسون، یکی از رویکردهای مهم تولید پیشسازهای نورونی دوپامینرژیک از hESC و پیوند آنها به بخشهایی از استریاتوم است. مطالعات بالینی اولیه در سالهای اخیر نشان دادهاند که این سلولها میتوانند پس از پیوند زنده بمانند و شواهدی از تولید دوپامین ایجاد کنند. با این حال، مطالعات موجود همچنان عمدتاً در مراحل اولیه ارزیابی ایمنی، امکانپذیری و تعیین دوز قرار دارند و برای اثبات قطعی اثربخشی به مطالعات بزرگتر و پیگیری طولانیمدت نیاز است.
یکی دیگر از پیشرفتهای مهم مربوط به دیابت نوع یک است. امکان تمایز hESCها به سلولهای جزایر پانکراس و سلولهای تولیدکننده انسولین به مرحلهای رسیده است که محصولات مشتق از آنها در بیماران مورد آزمایش قرار گرفتهاند. برخی مطالعات اخیر نشان دادهاند که سلولهای مشتق از ESC پس از پیوند میتوانند ترشح انسولین وابسته به گلوکز ایجاد کنند و در برخی بیماران نیاز به انسولین خارجی را به میزان چشمگیری کاهش دهند. با این حال، در محصولات allogeneic هنوز پاسخ ایمنی گیرنده و نیاز به immunosuppression یکی از محدودیتهای مهم محسوب میشود.
۱۴. خطر Tumorigenicity
یکی از مهمترین نگرانیهای ایمنی در استفاده درمانی از ESCها، خطر Tumorigenicity است. ویژگی خودنوزایی بسیار بالا و توانایی گسترده تمایز که ESCها را برای پزشکی بازساختی ارزشمند میکند، در صورت کنترل نامناسب میتواند خطر رشد غیرقابلکنترل را ایجاد کند. باقی ماندن حتی تعداد محدودی سلول پرتوان تمایزنیافته در محصول درمانی ممکن است زمینه تشکیل Teratoma را فراهم کند.
به همین دلیل، در تولید محصولات درمانی مشتق از ESC باید میزان سلولهای پرتوان باقیمانده با روشهای بسیار حساس ارزیابی شود. پروتکلهای تمایز باید بتوانند جمعیت سلولی نهایی با خلوص بالا ایجاد کنند و در بسیاری از موارد از روشهای purification یا حذف انتخابی سلولهای pluripotent باقیمانده استفاده میشود. مطالعات پیشبالینی طولانیمدت نیز برای بررسی احتمال تشکیل تومور از الزامات مهم توسعه چنین محصولات درمانی محسوب میشوند.
۱۵. ناپایداری ژنتیکی و اپیژنتیکی
ESCها در شرایط کشت طولانی ممکن است تغییرات ژنتیکی و اپیژنتیکی مختلفی کسب کنند. برخی از این تغییرات میتوانند مزیت رشد یا بقا برای یک subclone ایجاد کنند و در نتیجه طی پاساژهای متوالی آن جمعیت سلولی غالب شود. چنین تغییراتی ممکن است بدون ایجاد تغییر واضح در مورفولوژی رخ دهند، اما خصوصیات تمایزی و حتی ایمنی سلول را تحت تأثیر قرار دهند.
علاوه بر تغییرات کروموزومی، تغییرات epigenetic نیز اهمیت دارند. الگوی DNA methylation، وضعیت histone modifications و تنظیم X-chromosome در سلولهای زن ممکن است در اثر شرایط کشت تغییر کند. بنابراین کنترل کیفیت یک خط ESC تنها به اثبات بیان مارکرهای pluripotency محدود نیست و باید شامل ارزیابی دورهای genomic integrity و در برخی کاربردهای حساس بررسی وضعیت epigenetic نیز باشد.
۱۶. ایمنیشناسی و رد پیوند
بیشتر خطوط ESC مورد استفاده برای تولید سلولهای درمانی از نظر ژنتیکی با بیمار متفاوت هستند و بنابراین محصولات مشتق از آنها ماهیت Allogeneic دارند. سلولهای پیوندی ممکن است توسط سیستم ایمنی گیرنده بهعنوان بافت بیگانه شناسایی شوند و پاسخ ایمنی ایجاد کنند. شدت این پاسخ به نوع سلول، محل پیوند، میزان بیان مولکولهای HLA و وضعیت ایمنی بیمار بستگی دارد.
یکی از روشهای متداول برای کنترل این مشکل استفاده از داروهای immunosuppressive است، اما مصرف طولانیمدت این داروها میتواند با عوارض مختلف همراه باشد. به همین دلیل، یکی از محورهای مهم تحقیقات جدید توسعه خطوط ESC با سازگاری ایمنی بیشتر و استفاده از Genome Editing برای ایجاد Hypoimmune Cells است. هدف از این مطالعات تولید محصولات سلولی آماده مصرف است که بتوانند در تعداد زیادی از بیماران مورد استفاده قرار گیرند و در عین حال پاسخ ایمنی کمتری ایجاد کنند.
۱۷. مسائل اخلاقی مرتبط با ESC
اصلیترین مسئله اخلاقی در مورد hESC به نحوه تهیه این سلولها مربوط میشود. در روش کلاسیک ایجاد یک خط hESC، توده داخلی سلولی از بلاستوسیست جدا میشود و این فرایند معمولاً امکان ادامه تکوین طبیعی جنین را از بین میبرد. همین مسئله پرسش بنیادی درباره جایگاه اخلاقی جنین انسانی در مرحله پیش از لانهگزینی را مطرح کرده است. دیدگاههای فلسفی، دینی و حقوقی درباره زمان آغاز جایگاه اخلاقی جنین یکسان نیست و به همین دلیل قوانین مربوط به تحقیقات hESC در کشورهای مختلف تفاوت قابلتوجهی دارند.
یکی از تمایزهای مهم در بحث اخلاقی، تفاوت میان ایجاد یک خط جدید hESC و استفاده از یک خط سلولی موجود است. ایجاد خط جدید معمولاً مستلزم استفاده از یک بلاستوسیست است، اما پس از ایجاد یک خط ESC، سلولها میتوانند برای مدت بسیار طولانی تکثیر، منجمد، بانکسازی و بین مراکز تحقیقاتی توزیع شوند. بنابراین انجام هر آزمایش روی یک خط hESC موجود به معنی استفاده از یک جنین جدید نیست. این تمایز برای درک صحیح مباحث اخلاقی ESC اهمیت زیادی دارد.
۱۸. رضایت آگاهانه
اهدای جنین یا سایر مواد زیستی برای ایجاد hESC باید بر اساس Voluntary Informed Consent انجام شود. افرادی که جنین را اهدا میکنند باید بهطور روشن درباره ماهیت تحقیق، امکان ایجاد یک خط سلولی با قابلیت تکثیر طولانیمدت، احتمال انجام مطالعات ژنتیکی و امکان استفاده از سلول در پروژههای تحقیقاتی یا درمانی آینده آگاه شوند. همچنین باید مشخص باشد که ممکن است خط سلولی حاصل در اختیار سایر پژوهشگران قرار گیرد یا در توسعه محصولات تجاری نقش داشته باشد.
تصمیم مربوط به اهدای جنین برای تحقیق باید از تصمیمات مربوط به درمان ناباروری جدا باشد تا از هرگونه فشار یا تعارض منافع جلوگیری شود. اصول اخلاقی بینالمللی همچنین بر جلوگیری از ایجاد انگیزه مالی نامناسب برای اهدای جنین تأکید میکنند. پرداخت هزینههای مستقیم ممکن است تحت شرایط مشخص قابلقبول باشد، اما خرید و فروش جنین یا ایجاد انگیزه مالی قابلتوجه از نظر بسیاری از چارچوبهای اخلاقی قابل پذیرش نیست.
قانون 14 روز
یکی از شناختهشدهترین مفاهیم در اخلاق پژوهش جنین، 14-Day Rule است. این اصل تاریخی محدودیتی برای کشت آزمایشگاهی جنین انسان تا حدود چهارده روز پس از لقاح یا زمان ظهور primitive streak ایجاد کرده بود. اهمیت این مرحله در آن است که تشکیل primitive streak با آغاز gastrulation و تعیین محورهای اصلی بدن مرتبط است و پس از این مرحله امکان ایجاد دوقلوهای همسان نیز بهشدت کاهش مییابد.
پیشرفتهای جدید در فناوری کشت جنین و مدلهای جنینی مبتنی بر سلولهای بنیادی سبب شده است که درباره این قانون دوباره بحث شود. راهنماهای جدید ISSCR امکان بررسی علمی برخی مطالعات فراتر از این مرحله را تنها در شرایط بسیار محدود، در کشورهایی که قانون اجازه میدهد و تحت نظارت تخصصی علمی و اخلاقی مطرح کردهاند. بنابراین نمیتوان گفت قانون 14 روز بهطور کامل حذف شده است؛ بلکه رویکرد جدید بر بررسی موردبهمورد، ضرورت علمی و نظارت شدید تأکید دارد.
۱۹. مقایسه ESC و iPSC
کشفInduced Pluripotent Stem Cells (iPSCs) تحول بزرگی در حوزه سلولهای بنیادی ایجاد کرد. در این فناوری، یک سلول سوماتیک بالغ با استفاده از عوامل بازبرنامهریزی به وضعیت پرتوان بازگردانده میشود. مزیت اصلی iPSC آن است که برای تولید آن نیاز به استفاده از جنین نیست و میتوان خطوط پرتوان patient-specific ایجاد کرد. به همین دلیل بسیاری از نگرانیهای اخلاقی مرتبط با تولید ESC در مورد iPSC وجود ندارند.
با وجود این، iPSCها جایگزین کامل ESCها نشدهاند. فرایند reprogramming میتواند تغییرات ژنتیکی، اپیژنتیکی یا متابولیک خاصی ایجاد کند و بین خطوط مختلف iPSC تفاوتهای قابلتوجهی مشاهده میشود. ESCها همچنان یکی از مهمترین Reference Standards برای مطالعه pluripotency هستند و در بسیاری از پژوهشها، خصوصیات iPSC با ESC مقایسه میشود. علاوه بر این، بعضی از محصولات سلولی که در حال حاضر به مراحل پیشرفته توسعه بالینی رسیدهاند از خطوط ESC دارای سابقه طولانی کنترل کیفیت و بانکسازی تولید شدهاند.
جمعبندی
سلولهای بنیادی جنینی یکی از بنیادیترین ابزارهای زیستشناسی مدرن و پزشکی بازساختی هستند. توانایی آنها برای خودنوزایی گسترده و ایجاد مشتقات سه لایه زایای جنینی امکان مطالعه بسیاری از فرایندهایی را فراهم کرده است که بررسی مستقیم آنها در انسان امکانپذیر نیست. پیشرفت در محیطهای کشت تعریفشده، روشهای Directed Differentiation، ویرایش ژن، تولید ارگانوئید، بانکسازی سلولی و استانداردهای GMP موجب شده است که ESCها از یک ابزار صرفاً تحقیقاتی به یک منبع بالقوه برای تولید محصولات درمانی تبدیل شوند.
با این حال، استفاده از ESCها همچنان با چالشهایی مانند خطر Tumorigenicity، ناپایداری ژنتیکی، ناهمگنی سلولی، بلوغ ناکامل سلولهای تمایزیافته، رد ایمنی و پیچیدگی تولید در مقیاس بالینی همراه است. علاوه بر این، منشأ جنینی hESC سبب شده است که تولید خطوط جدید این سلولها تحت نظارت دقیق اخلاقی و قانونی قرار گیرد. در نتیجه، نگاه امروزی به ESC باید فراتر از شناسایی چند مارکر باشد و سه مؤلفه اصلی هویت سلولی، پرتوانی عملکردی و کیفیت ژنتیکی و زیستی را بهصورت همزمان مورد توجه قرار دهد.
منابع:
Beumer J, Clevers H. Hallmarks of stemness in mammalian tissues. Cell Stem Cell. 2024 Jan 4;31(1):7–24. https://doi.org/10.1016/j.stem.2023.12.006
Jackson BT, Finley LWS. Metabolic regulation of the hallmarks of stem cell biology. Cell Stem Cell. 2024 Feb 1;31(2):161–180. doi: 10.1016/j.stem.2024.01.003
de Morree A, Rando TA. Regulation of adult stem cell quiescence and its functions in the maintenance of tissue integrity. Nature Reviews Molecular Cell Biology. 2023 May;24(5):334–354. doi: 10.1038/s41580-022-00568-6
Cain TL, Derecka M, McKinney-Freeman S. The role of the haematopoietic stem cell niche in development and ageing. Nature Reviews Molecular Cell Biology. 2025 Jan;26(1):32–50. doi: 10.1038/s41580-024-00770-8
Qin X, Tape CJ. Functional analysis of cell plasticity using single-cell technologies. Trends in Cell Biology. 2024 Oct;34(10):854–864. doi: 10.1016/j.tcb.2024.01.006
Yagi M, Horng JE, Hochedlinger K. Manipulating cell fate through reprogramming: approaches and applications. Development. 2024 Oct 1;151(19):dev203090. doi: 10.1242/dev.203090
Rettkowski J, Cabezas-Wallscheid N. Regulation of hematopoietic stem cell dormancy and quiescence: insights into regeneration and disease. Annual Review of Cell and Developmental Biology. 2025;41:231–258. doi: 10.1146/annurev-cellbio-101323-023806
Ludwig TE, Andrews PW, Barbaric I, et al. ISSCR standards for the use of human stem cells in basic research. Stem Cell Reports. 2023 Sep 12;18(9):1744–1752. doi: 10.1016/j.stemcr.2023.08.003