Section outline
-
مقدمه
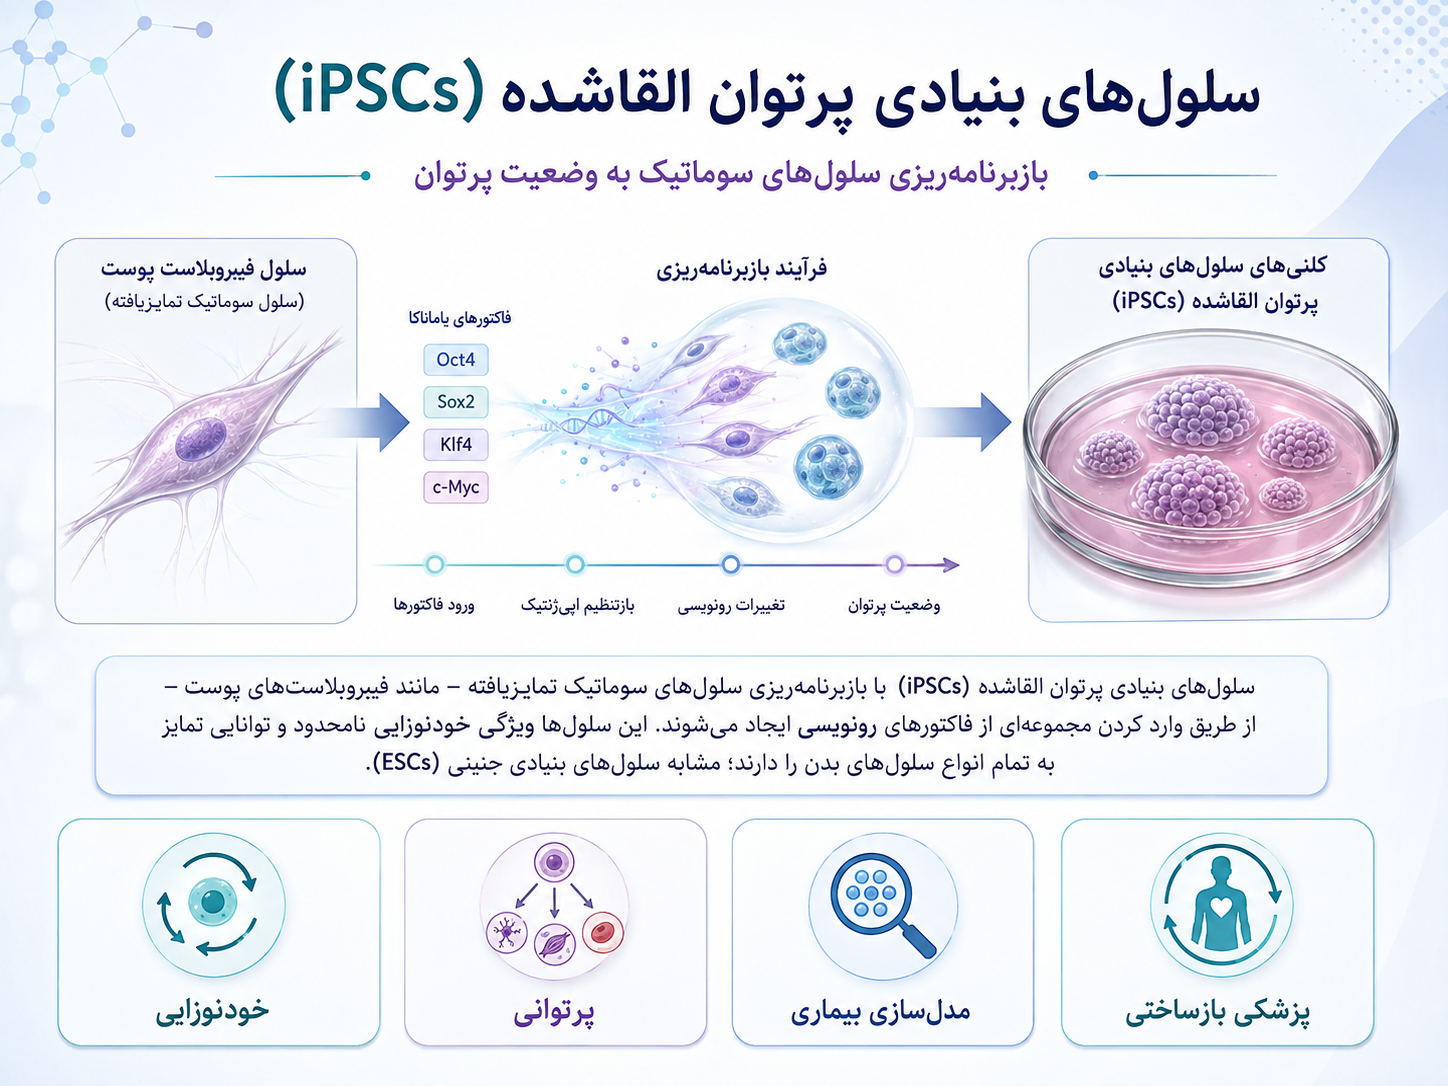
سلولهای بنیادی پرتوان القاشده یا Induced Pluripotent Stem Cells (iPSCs) سلولهایی هستند که از بازبرنامهریزی سلولهای سوماتیک تمایزیافته به یک وضعیت پرتوان ایجاد میشوند. این سلولها از نظر بسیاری از ویژگیهای بنیادی، از جمله توان خودنوزایی طولانیمدت، بیان شبکه ژنی مرتبط با پرتوانی و توانایی تمایز به مشتقات سه لایه زایای اکتودرم، مزودرم و اندودرم، شباهت زیادی به سلولهای بنیادی جنینی دارند. تفاوت اساسی آنها با ESCها در منشأ آنها است؛ برای تولید iPSC نیازی به جداسازی سلول از جنین نیست و میتوان از سلولهای بدن یک فرد بالغ برای ایجاد یک خط سلولی پرتوان استفاده کرد. همین ویژگی، iPSCها را به یکی از مهمترین فناوریهای زیستپزشکی برای مدلسازی بیماری، پزشکی شخصی، غربالگری دارو، مهندسی ژن و پزشکی بازساختی تبدیل کرده است.
کشف iPSC همچنین دیدگاه کلاسیک درباره برگشتناپذیر بودن تمایز سلولی را تغییر داد. امروزه میدانیم که هویت یک سلول بالغ، اگرچه توسط شبکههای ژنی و اپیژنتیکی بسیار پایدار حفظ میشود، یک وضعیت کاملاً غیرقابل تغییر نیست و با دستکاری مناسب شبکههای تنظیمی میتوان سلول را به یک وضعیت تکوینی ابتداییتر بازگرداند. به همین دلیل فناوری iPSC نهتنها یک ابزار عملی، بلکه شاهد مهمی بر پلاستیسیته هویت سلولی محسوب میشود. این دستاورد یکی از دلایلی بود که جایزه نوبل فیزیولوژی یا پزشکی سال 2012 به John Gurdon و Shinya Yamanaka برای نشان دادن امکان بازبرنامهریزی سلولهای بالغ به وضعیت پرتوان اعطا شد.
1. تاریخچه کشف iPSC
پیشزمینه علمی فناوری iPSC به مطالعات انتقال هسته سلول سوماتیک بازمیگردد. آزمایشهای John Gurdon در دهه 1960 نشان دادند که هسته یک سلول تمایزیافته هنوز اطلاعات ژنتیکی لازم برای ایجاد انواع مختلف سلولی را حفظ میکند و محیط سیتوپلاسمی اووسیت قادر است برنامه عملکردی این هسته را بازتنظیم کند. این یافته اولین شواهد قوی را فراهم کرد که تمایز سلولی نتیجه حذف دائمی اطلاعات ژنتیکی نیست، بلکه عمدتاً حاصل تغییر در نحوه استفاده از ژنوم است.
نقطه عطف اصلی در سال 2006 رخ داد. Kazutoshi Takahashi و Shinya Yamanaka نشان دادند که تنها با بیان چهار فاکتور رونویسی OCT3/4، SOX2، KLF4 و c-MYC در فیبروبلاستهای موش میتوان سلولهایی با ویژگیهای شبیه ESC ایجاد کرد. این چهار فاکتور بعدها با عنوان Yamanaka Factors یا OSKM شناخته شدند. سلولهای حاصل توسط پژوهشگران Induced Pluripotent Stem Cells نامیده شدند.
تنها یک سال بعد، در سال 2007، گروه Yamanaka موفق شد سلولهای پوست انسان بالغ را با همان چهار فاکتور OCT4، SOX2، KLF4 و c-MYC به سلولهای پرتوان بازبرنامهریزی کند. تقریباً همزمان، گروه James Thomson نیز با ترکیب OCT4، SOX2، NANOG و LIN28 خطوط iPSC انسانی ایجاد کرد. این مطالعات نشان دادند که بازبرنامهریزی سلول سوماتیک انسانی به pluripotency یک پدیده قابل تکرار است و الزاماً به استفاده از جنین یا انتقال هسته به اووسیت نیاز ندارد.
2. مفهوم بازبرنامهریزی سلولی
در فرایند تمایز طبیعی، سلولها بهتدریج شبکههای ژنی مربوط به پرتوانی را خاموش کرده و برنامههای ژنی اختصاصی یک بافت را فعال میکنند. این فرایند با تغییرات گسترده در ساختار کروماتین، متیلاسیون DNA، اصلاحات هیستونی، سازمان سهبعدی ژنوم و متابولیسم همراه است. در بازبرنامهریزی به iPSC، بخش بزرگی از این برنامه سوماتیک باید خاموش شده و شبکه تنظیمی مربوط به pluripotency دوباره فعال شود.
بنابراین، ایجاد iPSC صرفاً نتیجه روشن شدن چند ژن نیست، بلکه شامل بازسازی گسترده اپیژنوم و شبکه تنظیمی سلول است. مطالعات جدید بازبرنامهریزی را فرایندی چندمرحلهای میدانند که در مراحل اولیه آن بیان بسیاری از ژنهای سوماتیک کاهش پیدا میکند و سلول وارد وضعیتهای واسط میشود، در حالی که در مراحل بعدی شبکه درونزاد pluripotency فعال و تثبیت میشود. بخش ابتدایی این فرایند نسبتاً ناهمگون و stochastic است، در حالی که مراحل نهایی پس از فعال شدن شبکه pluripotency رفتار منظمتر و deterministicتری نشان میدهند.
یکی از تغییرات مهم در بازبرنامهریزی فیبروبلاستها، وقوع Mesenchymal-to-Epithelial Transition (MET) است. در این فرایند برخی خصوصیات مزانشیمی سلول اولیه کاهش پیدا میکند و سلول ویژگیهای اپیتلیال بیشتری به دست میآورد. همزمان، تغییرات گستردهای در DNA methylation رخ میدهد و آنزیمهایی مانند خانواده TET در حذف برخی الگوهای متیلاسیون سوماتیک و فعالشدن نواحی ژنی مرتبط با pluripotency مشارکت دارند.
3. فاکتورهای Yamanaka
ترکیب کلاسیک بازبرنامهریزی شامل OCT4، SOX2، KLF4 و c-MYC است. OCT4 و SOX2 از عناصر مرکزی شبکه رونویسی پرتوانی هستند و با اتصال به نواحی تنظیمی تعداد زیادی از ژنها، هویت pluripotent را ایجاد و تثبیت میکنند. KLF4 علاوه بر تأثیر بر شبکه pluripotency در تنظیم proliferation، epithelialization و مقاومت به برخی پاسخهای استرسی نقش دارد. c-MYC نیز با افزایش فعالیت رونویسی، تغییر ساختار کروماتین و تنظیم متابولیسم و تکثیر، کارایی reprogramming را افزایش میدهد.
با این حال، c-MYC یک proto-oncogene است و نگرانی درباره oncogenicity یکی از دلایلی بود که روشهای بعدی تلاش کردند استفاده از آن را حذف یا محدود کنند. در واقع نشان داده شد که iPSC را میتوان بدون c-MYC نیز ایجاد کرد، هرچند ممکن است بازده یا kinetics بازبرنامهریزی تغییر کند.
امروزه مشخص شده است که OSKM تنها ترکیب ممکن برای ایجاد pluripotency نیست. ترکیبهای متفاوتی از transcription factors، microRNAs، مولکولهای کوچک و تنظیمکنندههای اپیژنتیک میتوانند بازده یا مسیر reprogramming را تغییر دهند. با این حال، ترکیب OSKM همچنان چارچوب کلاسیک و آموزشی اصلی برای توضیح ایجاد iPSC محسوب میشود.
4. منابع سلولی برای تولید iPSC
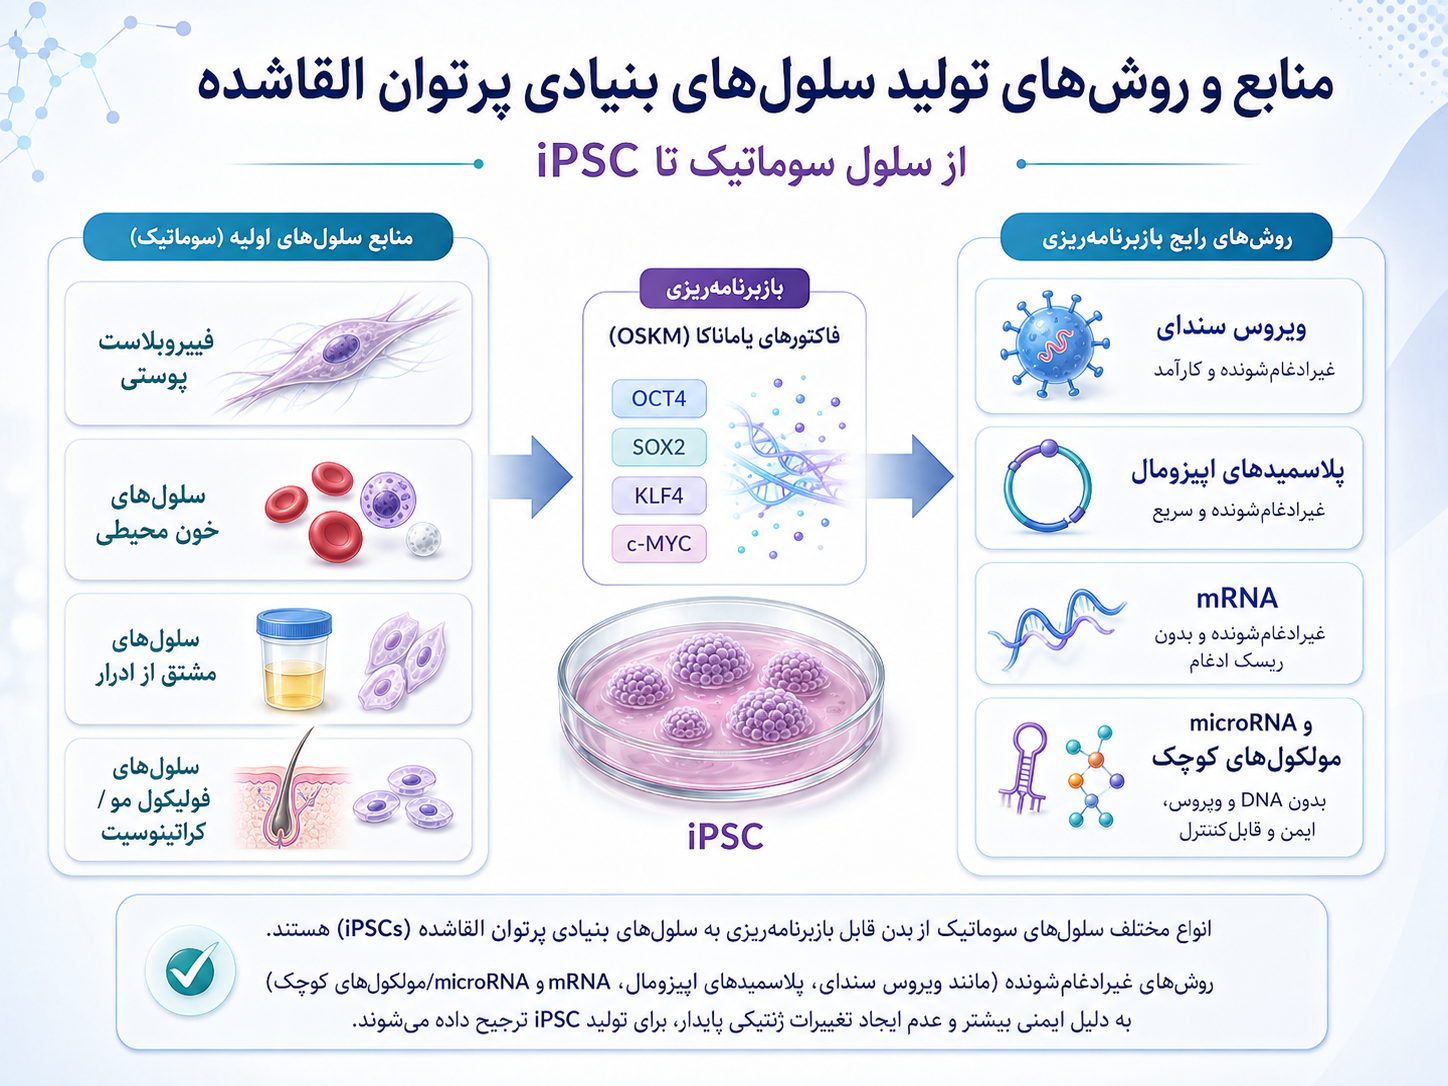
یکی از مزایای مهم فناوری iPSC این است که طیف گستردهای از سلولهای سوماتیک میتوانند بهعنوان ماده اولیه مورد استفاده قرار گیرند. فیبروبلاستهای پوستی از نخستین و شناختهشدهترین منابع تولید iPSC بودهاند و همچنان در بسیاری از مطالعات مورد استفاده قرار میگیرند. با این حال، نمونهبرداری پوستی نیازمند biopsy است و کشت اولیه فیبروبلاست نیز زمانبر است.
امروزه سلولهای موجود در خون محیطی، بهویژه PBMCها، یکی از منابع بسیار رایج هستند؛ زیرا نمونه خون بهسادگی قابل تهیه است و امکان ایجاد بانکهای بزرگ iPSC را فراهم میکند. سلولهای خون بند ناف نیز برای تولید iPSC مورد استفاده قرار گرفتهاند. Keratinocyteها، سلولهای فولیکول مو و برخی سلولهای اپیتلیالی نیز قابلیت بازبرنامهریزی دارند.
یکی از منابع جالبتر، سلولهای جداشده از ادرار است. سلولهای اپیتلیالی و سایر سلولهای زنده موجود در نمونه ادرار را میتوان بدون انجام یک روش تهاجمی جمعآوری، تکثیر و بازبرنامهریزی کرد. به همین دلیل urine-derived iPSCs بهویژه برای مطالعاتprecision medicine، بیماریهای ژنتیکی و ایجاد biobankهای بزرگ مورد توجه قرار گرفتهاند.
نوع سلول اولیه میتواند بر کارایی بازبرنامهریزی، سرعت ایجاد کلونیها و حتی برخی خصوصیات مولکولی iPSC حاصل اثر بگذارد. با این حال، مطالعه مقایسهای جدید در سال 2025 نشان داد که در مجموعه مورد بررسی، روش reprogramming اثر قابلتوجهتری از نوع ماده اولیه بر موفقیت کلی ایجاد iPSC داشته و Sendai virus نسبت به روش episomal موفقیت بیشتری نشان داده است.
5. روشهای تولید iPSC
روشهای اولیه ایجاد iPSC بر استفاده از Retroviral و Lentiviral vectors برای انتقال ژنهای OSKM متکی بودند. این روشها توانایی انتقال مؤثر ژن به سلول را دارند، اما DNA ناقل میتواند وارد ژنوم میزبان شود. این integration ممکن است باعث insertional mutagenesis، تغییر بیان ژنهای مجاور و باقی ماندن یا فعالشدن مجدد transgeneهای reprogramming شود. به همین دلیل، روشهای integrating امروزه برای تولید سلولهایی که هدف آنها کاربرد بالینی است، گزینه مطلوبی محسوب نمیشوند.
یکی از پرکاربردترین روشهای غیرادغامی، استفاده از Sendai Virus است. Sendai virus یک RNA virus است و چرخه آن در سیتوپلاسم انجام میشود، بنابراین بهطور طبیعی DNA خود را وارد ژنوم سلول میزبان نمیکند. پس از چندین پاساژ، vector و transgeneهای آن باید از سلول حذف شوند و این موضوع باید بهطور تجربی تأیید شود. Sendai-based reprogramming به دلیل بازده و قابلیت اطمینان مناسب به یکی از روشهای متداول ایجاد iPSC انسانی تبدیل شده است. مطالعات مقایسهای کلاسیک و جدید هر دو نشان دادهاند که این روش از نظر کارایی عملی جایگاه مهمی دارد.
روش دیگر استفاده از Episomal Plasmids است. این پلاسمیدها بدون integration دائمی در ژنوم، عوامل reprogramming را بهطور موقت بیان میکنند و در طول تقسیمات سلولی بهتدریج از بین میروند. هزینه کمتر، سادگی نسبی و امکان استفاده در برنامههای clinical-grade از مزایای این سیستم است، هرچند بازده آن بسته به نوع سلول و شرایط آزمایشگاهی میتواند پایینتر از Sendai virus باشد.
انتقال modified mRNA نیز روش مهم دیگری است. در این رویکرد RNAهای کدکننده عوامل بازبرنامهریزی وارد سلول میشوند و چون DNA خارجی وارد ژنوم نمیشود، احتمال insertional mutagenesis ناشی از vector کاهش مییابد. microRNAها، recombinant proteins و small molecules نیز بهتنهایی یا همراه با سایر روشها مورد بررسی قرار گرفتهاند. هدف مشترک فناوریهای جدید حرکت به سمت ایجاد integration-free و transgene-free iPSC با کارایی بالا و قابلیت سازگاری با تولید GMP است.
6. ویژگیهای مورفولوژیک iPSC
کلونیهای انسانی iPSC در حالت conventional یا primed معمولاً از نظر مورفولوژی شباهت زیادی به hESC دارند. کلونیها فشرده هستند، مرز نسبتاً مشخصی دارند و سلولها کوچک بوده و نسبت هسته به سیتوپلاسم در آنها بالا است. هسته معمولاً بزرگ و دارای nucleoli برجسته است و سلولها تماس نزدیک با یکدیگر دارند.
تغییر شکل کلونی، افزایش فاصله بین سلولها، flatten شدن سلولها یا ایجاد مناطق نامنظم در حاشیه کلونی میتواند از علائم spontaneous differentiation باشد. با این حال، morphology بهتنهایی هیچگاه برای تأیید هویت یک iPSC line کافی نیست و باید با بررسیهای مولکولی، ژنتیکی و عملکردی همراه باشد. استانداردهای ISSCR نیز بر استفاده از مجموعهای از روشهای characterization بهجای اتکا به یک معیار منفرد تأکید دارند.
7. مارکرهای شناسایی iPSC
iPSCهای انسانی تمایزنیافته معمولاً شبکهای از transcription factors مرتبط با pluripotency را بیان میکنند. OCT4/POU5F1، SOX2 و NANOG از مهمترین عوامل این شبکه هستند. علاوه بر آن، آنتیژنهای سطحی مانند SSEA-3، SSEA-4، TRA-1-60 و TRA-1-81 و فعالیت Alkaline Phosphatase نیز بهطور گسترده برای بررسی وضعیت undifferentiated استفاده میشوند.
بیان این مارکرها را میتوان توسط ایمنوسیتوشیمی، ایمنوفلورسنت، فلوسیتومتری و بیان کمی ژن بررسی کرد. با این حال، همانند سلول های بنیادی جنینی، مثبت بودن OCT4 یا NANOG بهتنهایی اثباتکننده پرتوانی نیست. ISSCR تأکید میکند که pluripotency یک ویژگی عملکردی است و باید توان سلول برای ایجاد مشتقات هر سه لایه جنینی نشان داده شود.
8. اثبات پرتوانی
برای تأیید پرتوانی ، این سلول ها باید بتواند در شرایط مناسب مشتقات اکتودرم، مزودرم و اندودرم را ایجاد کند. امروزه استفاده از پروتکلهای controlled tri-lineage differentiation و بررسی مارکرهای اختصاصی هر لایه جنینی یکی از روشهای اصلی مشخصه یابی است.
در گذشته Teratoma Assay بهطور گسترده برای اثبات پر توانی مورد استفاده قرار میگرفت؛ در این روش سلول به حیوان نقص سیستم ایمنی تزریق میشد و تشکیل بافتهای مربوط به سه لایه جنینی بررسی میگردید. امروزه ISSCR تشکیل تراتوم برای مشخصه یابی را روتین نمیداند و تاکید بر روش های کنترل شده برون تنی دارد.
9. کنترل کیفیت iPSC
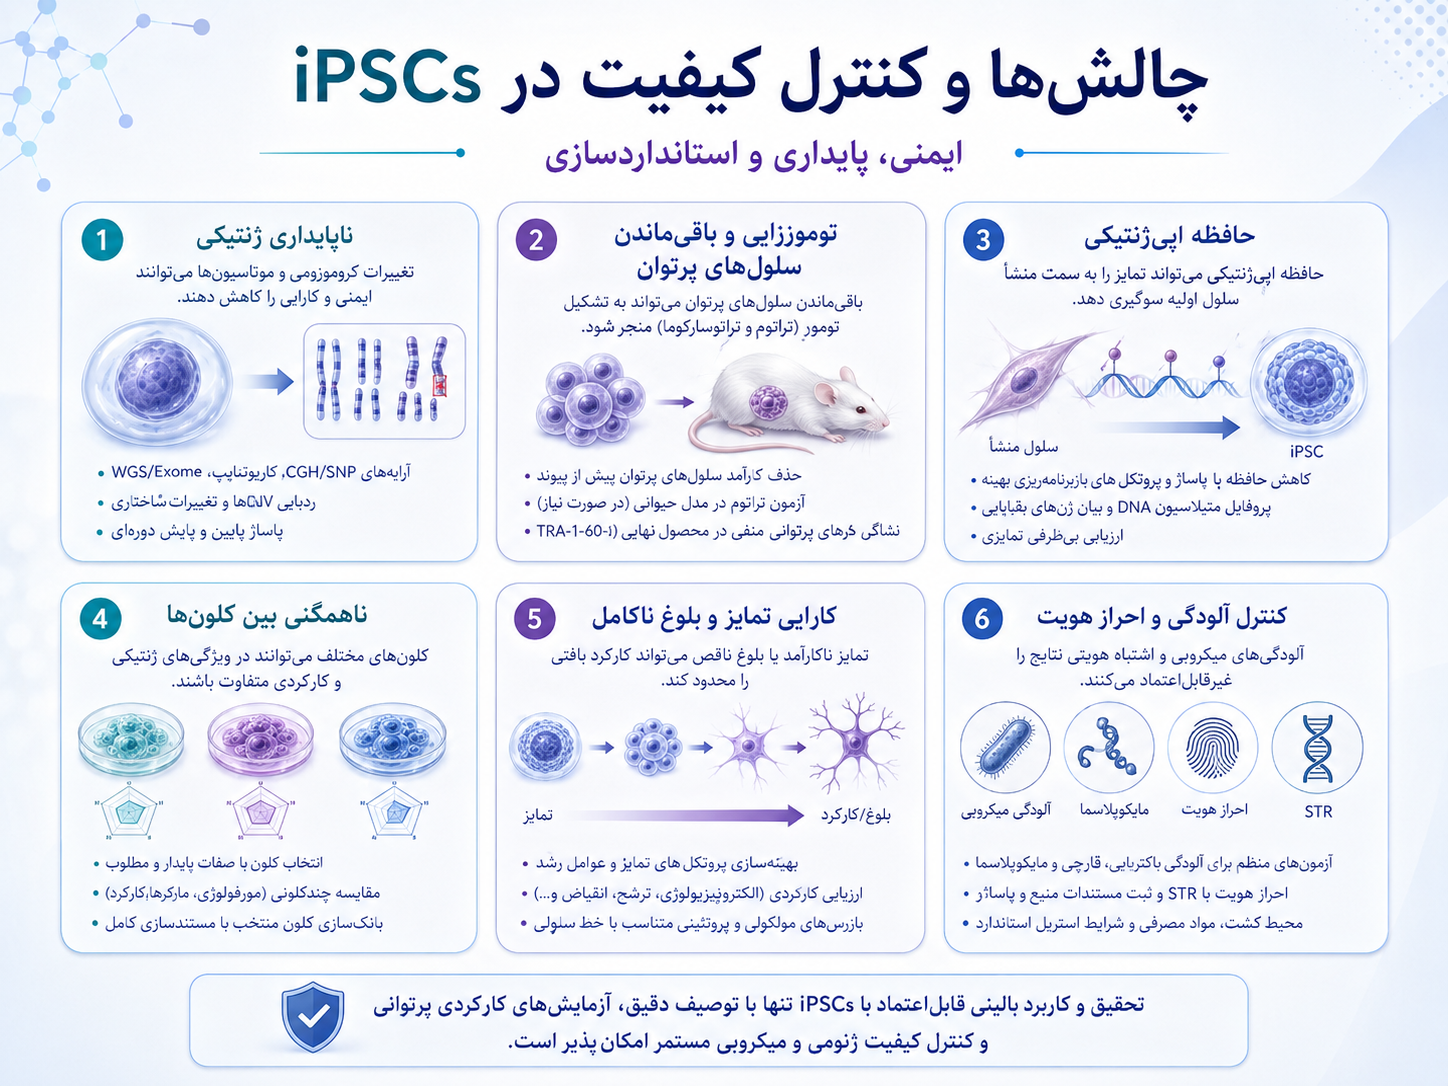
مشخصه یابی این سلول ها نباید به خصوصیات پرتوانی محدود گردد بلکه باید ویژگی های دیگر از جمله تغییرات ژنتیکی، آلودگی به میکروارگانیسم ها، قدرت تکثیر و بیان ها مارکر های اختصاصی در سطح ژن و پروتئین نیز اهمیت اساسی دارد. برای تأیید هویت خطوط انسانی استفاده از STR profiling رایج است و آزمایش دورهای Mycoplasma نیز یکی از الزامات پایه کشت سلولی محسوب میشود.
یکی از مسائل مهم در این سلول ها، تغییرات ژنتیکی است. بخشی از این تغییرات ممکن است از سلول دهنده وجود داشته باشند، بخشی در طی بازبرنامه نویسی ایجاد یا انتخاب شوند و برخی دیگر در نتیجه کشت طولانیمدت و فشار انتخابی محیط کشت پدیدار شوند. بنابراین کاریوتایپ، SNP array، chromosomal microarray یا sequencing، بسته به هدف مطالعه، میتوانند برای ارزیابی genomic integrity استفاده شوند.
این موضوع اهمیت بالینی زیادی دارد. برای مثال gain of chromosome 20q11.21 یکی از ناهنجاریهای recurrent در human pluripotent stem cell cultures است و به دلیل ایجاد مزیت رشد و ارتباط برخی ژنهای این ناحیه با سرطان، باید مورد توجه قرار گیرد. مرور منتشرشده در Stem Cell Reports در سال 2024 این ناهنجاری را یکی از تغییرات ژنتیکی مهم و پرتکرار در hPSC culture معرفی کرده است.
10. حافظه اپیژنتیکی
بازبرنامهریزی همیشه تمام آثار اپیژنتیکی سلول اولیه را بهطور کامل حذف نمیکند. برخی سلول های پرتوان القا شده میتوانند بخشی از الگوهای DNA methylation، chromatin یا gene expression مربوط به سلول donor را حفظ کنند؛ پدیدهای که Epigenetic Memory نامیده میشود.
این حافظه ممکن است باعث شود برخی این سلول ها تمایل بیشتری برای بازگشت به رده سلول اولیه داشته باشند یا کارایی تمایز آنها به برخی دودمانها متفاوت باشد. شدت این پدیده وابسته به خط سلولی، روش بازبرنامه نویسی، تعداد پاساژها و شرایط کشت است و در برخی خطوط با گذشت زمان کاهش پیدا میکند. مطالعه سال 2024 نیز نشان داده است که آثار source-cell-specific epigenetic memory میتوانند در سلول ها باقی بمانند.
این موضوع یکی از دلایل مهمی است که در disease modeling نباید نتیجه یک بیمار و یک clone را به کل بیماری تعمیم داد. استفاده از چند clone مستقل، چند دهنده و در صورت امکان isogenic controls میتواند اعتبار نتایج را افزایش دهد.
11. شرایط کشت
iPSCهای انسانی امروزه معمولاً در سیستمهای feeder-free و chemically defined کشت داده میشوند. ماتریکسهایی مانند recombinant Vitronectin یا Laminin و محیطهای تعریفشده برای نگهداری این سلول ها امکان کاهش تنوع و حذف بسیاری از ترکیبات حیوانی را فراهم کردهاند.
برای برخی روشهای پاساژ، سلولها بهصورت تجمعی منتقل میشوند، در حالی که در سیستمهای دیگر dissociation به single cells انجام میشود. از آنجا که این سلول های انسانی پس از single-cell dissociation نسبت به apoptosis حساس هستند، استفاده کوتاهمدت از ROCK inhibitor در هنگام پاساژ یا دفریز کردن میتواند زده مانی را افزایش دهد.
برای کاربرد درمانی، شرایط تولید باید به سمت مواد تعریفشده، xeno-free، استاندارد، قابل ردیابی و سازگار با Good Manufacturing Practice (GMP) حرکت کند. کنترل تعداد پاساژ، شرایط انجماد و دفریز کردن، کشت و کیفیت مواد اولیه نیز برای قابل تکرار پذیزی اهمیت زیادی دارد. ISSCR تأکید میکند که جزئیات تاریخچه کشت و شرایط آزمایش باید بهطور دقیق گزارش شوند.
12. تمایز iPSC
مانند سلول های بنیادی جنینی ها، این سلول ها میتوانند از طریق spontaneous differentiation یا روشهای هدایتشده به انواع مختلف سلولی تبدیل شوند. تشکیل Embryoid Body یکی از روشهای کلاسیک تمایز است، اما محصولات حاصل معمولاً heterogeneous هستند.
در کاربردهای مدرن بیشتر از Directed Differentiation استفاده میشود. در این روش، مسیرهای embryonic development بهصورت مرحلهبهمرحله در محیط کشت تقلید میشوند و با فعال یا مهار کردن مسیرهایی مانند WNT، BMP، TGF-β/Activin/Nodal، FGF، SHH و Notch، سلول به سمت رده مورد نظر هدایت میشود.
با این روش تاکنون انواع بسیار متنوعی از سلولها شامل cardiomyocytes، neurons، dopaminergic neurons، motor neurons، retinal pigment epithelial cells، hepatocyte-like cells، pancreatic endocrine cells، endothelial cells، skeletal muscle cells و انواع مختلف سلولهای ایمنی از iPSC تولید شدهاند.
13. مدلسازی بیماری
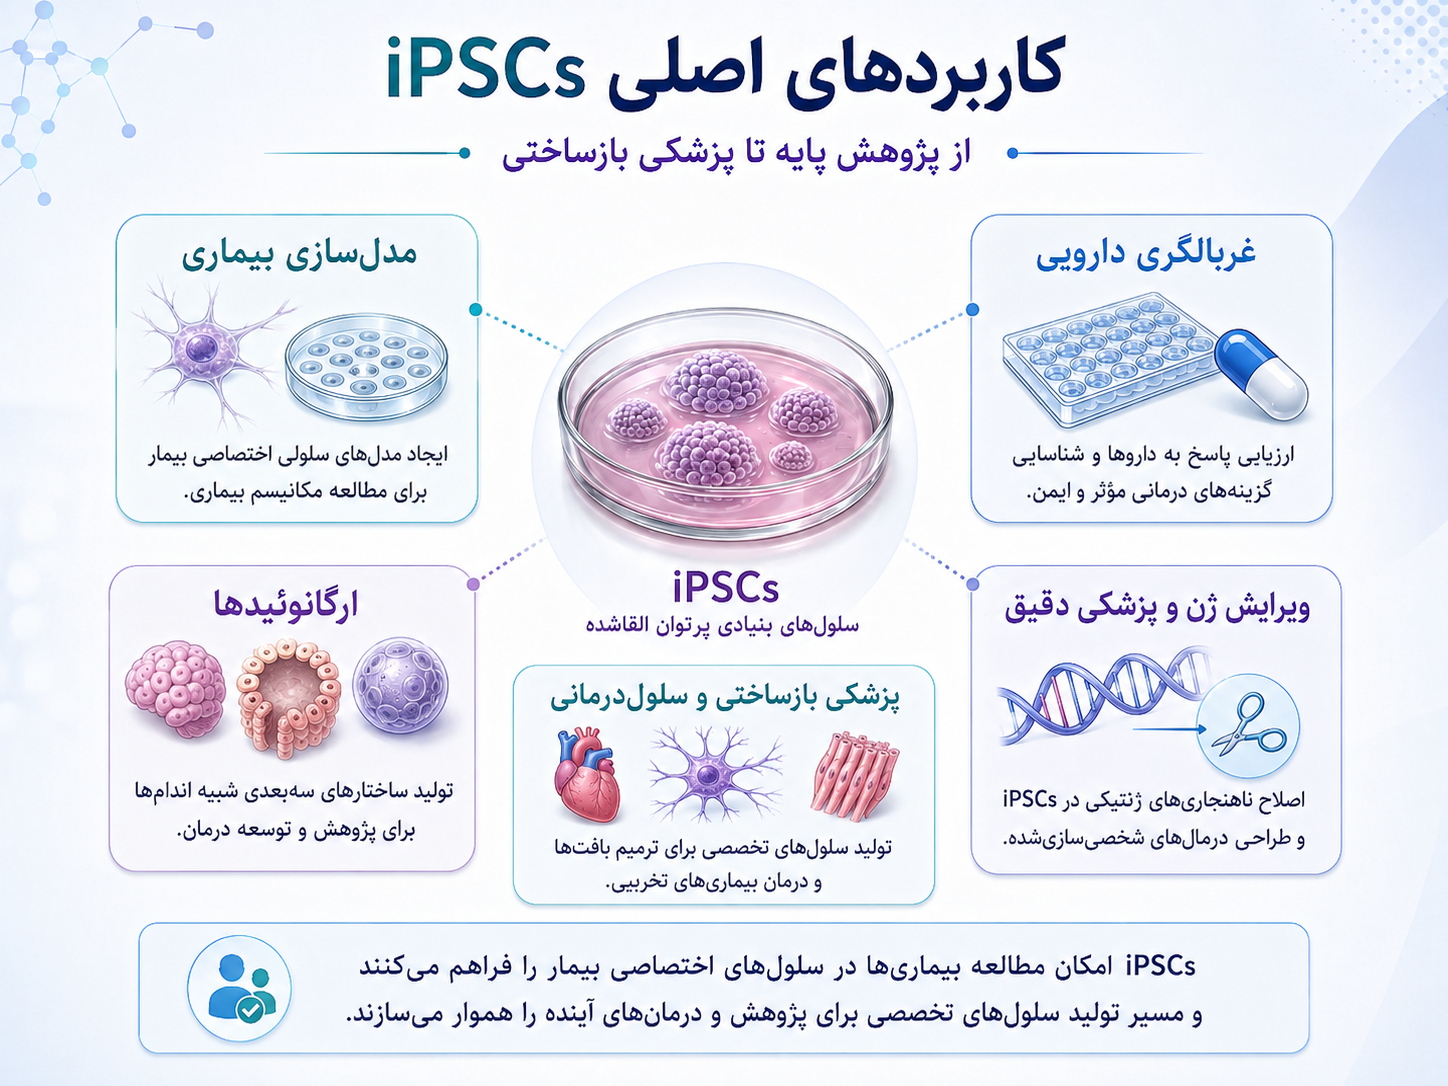
یکی از موفقترین کاربردهای این سلول ها، Disease Modeling است. میتوان از یک بیمار نمونهای مانند خون یا پوست دریافت کرد، این سلول ها ایجاد نمود و سپس آن را به نوع سلولی درگیر در بیماری تمایز داد. به این ترتیب بیماریهایی که دسترسی مستقیم به بافت آنها دشوار است را میتوان در شرایط آزمایشگاه مطالعه کرد.
این رویکرد بهویژه در بیماریهای عصبی، قلبی و بیماریهای ژنتیکی اهمیت زیادی دارد. برای مثال میتوان از iPSC بیمار مبتلا به یک بیماری نورودژنراتیو، نورون تولید کرد و تغییرات سلولی را قبل از ظهور علائم بالینی مطالعه نمود.
ترکیب iPSC با CRISPR/Cas genome editing قدرت این مدلها را بسیار افزایش داده است. میتوان mutation بیماریزا را در iPSC بیمار اصلاح کرد و دو خط تقریباً یکسان ایجاد نمود که فقط در mutation مورد مطالعه متفاوت باشند. این خطوط isogenic controls یکی از بهترین روشها برای کاهش تأثیر variation ژنتیکی بین افراد هستند.
14. Organoid و مدلهای سهبعدی
توسعه organoid technology یکی از مهمترین تحولات کاربردی این سلولها در سالهای اخیر بوده است. این سلول ها میتواند به ساختارهای سهبعدی خودسازمانیافتهای تمایز پیدا کند که برخی ویژگیهای سازمان بافتی و تعاملات سلولی یک اندام را بازسازی میکنند.
Brain organoids، retinal organoids، intestinal organoids، kidney organoids و cardiac tissue models نمونههایی از این فناوری هستند. ترکیب organoidها با single-cell sequencing، spatial transcriptomics و genome editing امکان مطالعه تکوین و بیماری انسان را با دقت بسیار بیشتری فراهم کرده است.
با این حال، organoidها نسخه کامل یک اندام انسانی نیستند و محدودیتهایی مانند بلوغ ناکامل، فقدان عروق مناسب در بسیاری از مدلها و variation بین نمونهها دارند.
15. غربالگری دارویی و پزشکی شخصی
iPSCهای patient-specific این امکان را فراهم میکنند که اثر داروها بر سلولهای دارای ژنوم همان بیمار بررسی شود. از این طریق میتوان پاسخ دارویی، toxicity و تفاوتهای فردی در حساسیت به دارو را مطالعه کرد.
Cardiomyocyteهای مشتق از iPSC در toxicology و بررسی cardiotoxicity داروها مورد توجه ویژه قرار گرفتهاند. مدلهای عصبی، کبدی و سایر lineageها نیز برای drug discovery و high-throughput screening استفاده میشوند.
در آینده، ترکیب iPSC، organoid، genome editing و فناوریهای multi-omics میتواند به توسعه مدلهای دقیقتر Precision Medicine کمک کند.
16. کاربرد در پزشکی بازساختی
مهمترین چشمانداز درمانی سلولها بنیادی جنینی، تولید تعداد زیاد سلولهای تخصصی برای جایگزینی سلولهای آسیبدیده است. دو راهبرد اصلی وجود دارد: تولید این سلول ها به صورت از خود بیمار یا استفاده از خطوط استاندارد آلوژنیک که از قبل تولید، کنترل و بانکسازی شدهاند.
در رویکرد اتولوگ، مزیت اصلی تطابق ژنتیکی بیشتر با بیمار است، اما تولید یک محصول اختصاصی برای هر فرد پرهزینه، زمانبر و از نظر کنترل کیفیت پیچیده است. در مقابل، ایجاد iPSC banks و خطوط HLA-matched یا genetically engineered امکان توسعه محصولات off-the-shelf را فراهم میکند.
17. وضعیت فعلی کارآزماییهای بالینی
ترجمه بالینی این سلول ها هنوز در مراحل اولیه قرار دارد. یک مروری نظامند منتشرشده در سال 2025 که مطالعات منتشرشده و کارآزمایی های بالینی ها را تا 29 ژانویه 2025 بررسی کرد، 10 مطالعه بالینی منتشرشده و 22 کارآزمایی در حال انجام مبتنی بر سلول های بنیادی پرتوان القا شده را شناسایی کرد. کاربردها شامل بیماریهای قلبی، اختلالات چشمی، سرطان، GVHD و تولید سلولهای خونی بود. مطالعات منتشرشده عمدتاً کوچک و بدون گروه کنترل بودند و در مجموع 115 بیمار درمان شده بودند؛ بنابراین هنوز برای نتیجهگیری قطعی درباره کارآمدی بسیاری از محصولات زود است.
این وضعیت نشان میدهد که این سلول ها از مرحله مفهوم و مطالعات حیوانی عبور کرده و وارد پزشکی انسانی شده است، اما هنوز نمیتوان آن را برای اغلب بیماریها یک درمان روتین یا اثباتشده دانست.
18. خطر Tumorigenicity
یکی از مهمترین چالشهای درمانهای مشتق از این سلول ها خطر تومورزایی است. اگر در محصول نهایی سلولهای پرتوان تمایزنیافته باقی بمانند، امکان تشکیل تراتوم وجود دارد. همچنین تغییرات ژنتیکی یا تغییراتی که موجب رشد خارج از کنترل شوند میتوانند خطر بالقوه ایجاد کنند.
بنابراین محصولات درمانی باید از نظر residual pluripotent cells، identity، purity، genomic integrity و عملکرد نهایی بهطور دقیق بررسی شوند. حذف یا خالص سازی سلولهای هدف، استفاده از تست های حساسیت برای تشخیص سلولهای پرتوان باقیمانده و انجام مطالعات طولانیمدت تومرزایی از الزامات مهم توسعه درمانهای مبتنی بر این سلول ها هستند.
19. بلوغ ناقص سلولهای مشتق از iPSC
یکی دیگر از محدودیتهای مهم این است که سلولهای تمایز یافته حاصل از این سلول ها در بسیاری از پروتکلها بیشتر شبیه سلولهای جنینی هستند تا سلولهای کاملاً بالغ بزرگسال. این مسئله بهویژه درiPSC-derived cardiomyocytes، hepatocytes و برخی neurons مشاهده میشود.
در نتیجه، وجود یک مارکر های اختصاصی به معنی بلوغ کامل عملکردی نیست. امروزه تلاش زیادی برای توسعه روشهای بالغسازی با استفاده از تحرکات الکتریکی یا مکانیکی، کشت طولانیتر، محیط سهبعدی، هم کشتی، تغییر متابولیسم و organ-on-chip systems انجام میشود.
20. مسائل اخلاقی
این سلول ها یکی از مهمترین نگرانیهای اخلاقی سلول های بنیادی جنینی، یعنی تخریب جنین برای ایجاد یک خط پرتوانی را ندارند. با این حال، این موضوع به معنی فاقد مسئله اخلاقی بودن این سلول ها نیست.
سلولهای اهداشده میتوانند به خطوطی با عمر تقریباً نامحدود تبدیل شوند، ژنوم دهنده را در خود نگه دارند، در اختیار سایر مراکز قرار گیرند و برای کاربردهایی استفاده شوند که در زمان اهدای نمونه هنوز وجود نداشتهاند. بنابراین رضایت، حفاظت از اطلاعات ژنتیکی، حریم خصوصی، استفاده تجاری و اشتراکگذاری خطوط سلولی از مسائل مهم اخلاقی هستند.
موضوع زمانی پیچیدهتر میشود که این سلولها برای تولید gamete-like cells، stem-cell-based embryo models یا برخی chimeric studies استفاده شود. راهنمای ISSCR نسخه بهروزشده 2025 تأکید میکند که consent برای اهدای سلول باید احتمال ایجادiPSC، استفادههای درمانی و تجاری و کاربردهای احتمالی مانند ایجاد gametes یا سایر مدلهای مشتق از سلول بنیادی را متناسب با پروژه پوشش دهد و برخی کاربردهای حساس نیازمند نظارت تخصصی علمی و اخلاقی هستند.
جمعبندی
سلولهای بنیادی پرتوان القاشده یکی از مهمترین دستاوردهای زیستشناسی سلولی مدرن هستند و نشان دادهاند که هویت یک سلول بالغ تحت شرایط مناسب قابل بازبرنامهریزی است. این سلول ها با ترکیب پرتوانی، خود تجدید شوندگی، قابلیت تولید از افراد مختلف و امکان مهندسی ژنتیک یک پلتفرم بسیار قدرتمند برای مطالعه بیماری، کشف دارو ها، تکنولوژی ارگانوئید، پزشکی شخص محور و پزشکی بازساختی ایجاد کردهاند.
با این حال، کیفیت یک رده از این سلولها را نمیتوان صرفاً بر اساس موفولوژی یا بیان OCT4 و NANOG تعیین کرد. منشأ سلول، روش بازبرنامه نویسی، عدم وجود vector integration، pluripotency عملکردی، genomic integrity، epigenetic state، identity، microbiological quality و قابلیت reproducible differentiation همگی باید مورد توجه قرار گیرند.
پیشرفتهای بالینی سالهای اخیر، بهویژه مطالعه iPSC-derived dopaminergic progenitors در Parkinson's disease، نشان میدهند که فناوری iPSC وارد مرحله واقعی clinical translation شده است. با وجود این، چالشهایی مانند tumorigenicity، genomic abnormalities، بلوغ ناقص سلولهای مشتقشده، immune compatibility، variation بین خطوط و تولید استاندارد در مقیاس GMP همچنان باید حل شوند. در نتیجه، آینده iPSC احتمالاً نه فقط در درمان اختصاصی هر بیمار، بلکه در توسعه بانکهای استاندارد iPSC، خطوط مهندسیشده، محصولات off-the-shelf، organoids و مدلهای دقیق بیماری شکل خواهد گرفت.
منابع
Takahashi K, Yamanaka S. Induction of pluripotent stem cells from mouse embryonic and adult fibroblast cultures by defined factors. Cell. 2006;126(4):663–676. doi: 10.1016/j.cell.2006.07.024.
Takahashi K, Tanabe K, Ohnuki M, et al. Induction of pluripotent stem cells from adult human fibroblasts by defined factors. Cell. 2007;131(5):861–872. doi: 10.1016/j.cell.2007.11.019.
Yu J, Vodyanik MA, Smuga-Otto K, et al. Induced pluripotent stem cell lines derived from human somatic cells. Science. 2007;318(5858):1917–1920. doi: 10.1126/science.1151526.
Cerneckis J, Cai H, Shi Y. Induced pluripotent stem cells (iPSCs): molecular mechanisms of induction and applications. Signal Transduction and Targeted Therapy. 2024;9:112. doi: 10.1038/s41392-024-01809-0.
Ludwig TE, Andrews PW, Barbaric I, et al. ISSCR standards for the use of human stem cells in basic research. Stem Cell Reports. 2023;18(9):1744–1752. doi: 10.1016/j.stemcr.2023.08.003.
Lin YH, Lehle JD, McCarrey JR. Source cell-type epigenetic memory persists in induced pluripotent cells but is lost in subsequently derived germline cells. Front Cell Dev Biol. 2024;12:1306530. doi: 10.3389/fcell.2024.1306530.
Christiansen JR, Kirkeby A. Clinical translation of pluripotent stem cell-based therapies: successes and challenges. Development. 2024;151(7):dev202067. doi: 10.1242/dev.202067.
Sawamoto N, Doi D, Nakanishi E, et al. Phase I/II trial of iPS-cell-derived dopaminergic cells for Parkinson’s disease. Nature. 2025;641:971–977. doi: 10.1038/s41586-025-08700-0.
Dhaiban S, Chandran S, Noshi M, Sajini AA. Clinical translation of human iPSC technologies: advances, safety concerns, and future directions. Front Cell Dev Biol. 2025;13:1627149. doi: 10.3389/fcell.2025.1627149.
International Society for Stem Cell Research. Guidelines for Stem Cell Research and Clinical Translation. Version 1.2, August 2025.